专家共识丨新型β-内酰胺酶抑制剂复方制剂临床应用专家共识
一 共识制订过程及方法
共识制订过程及方法 本共识的制订方法和流程主要基于中华医学会《中国制订/修订临床诊疗指南的指导原则(2022版)》和国际实践指南报告规范(reporting items for practice guidelines in healthcare,RIGHT),采用英国牛津大学循证医学中心2011年版证据等级标准对纳入文献进行质量评价,在此基础上,通过全体专家投票对推荐意见达成共识以确定推荐强度:同意率≥90%为强推荐;同意率在75%~<90%为弱推荐;同意率<75%不形成推荐。共识在国际实践指南注册与透明化平台(http://www.guidelines-registry.org/)进行注册(注册号:PREPARE-2025CN1407)。 指南工作组在68位感染病学、呼吸与危重症学、重症医学、血液科、微生物学、药学、流行病学、医院感染管理科等学科的医疗专家中进行调研,构建了9个关于新型β-内酰胺酶抑制剂复方制剂的临床关键问题。根据构建的临床问题,系统检索PubMed、Web of Science、EmBase、中国知网、维普、万方数据知识服务平台等数据库中从建库至2025年11月30日的中英文文献,经去重和同类文献优选等处理,最终纳入符合本共识主题的文献。 本共识由执笔组撰写初稿,专家组对推荐意见进行多轮讨论、修改和评议,再由执笔组修改后递交外部评审专家评阅,最终由专家组组长根据外审意见,确定最终版本并核准最终的推荐意见。
二 抗菌药物使用基本原则
抗菌药物使用基本原则 抗菌药物的使用需严格遵循合理用药原则,以确保疗效、减少耐药性产生、降低不良反应风险。其核心原则围绕"合理选择、精准使用、全程管理"展开。临床诊断为细菌性感染,开始抗菌药物治疗前应尽可能留取标本,分离出病原微生物,并确定感染病原体的敏感性。条件许可时需重点关注临床常见的耐药基因,特别是碳青霉烯类耐药相关的blaKPC、blaNDM、blaIMP、blaVIM、blaOXA-23、blaOXA-48、blaOXA-51等基因,早期酶型检测可加速CRO感染的早期诊断和精准治疗,显著降低患者病死率。在病原微生物尚未明确前,可根据患者的感染部位、基础疾病、发病情况、发病场所、既往抗菌药物用药史及其治疗反应等推测可能的病原体,并结合当地细菌耐药性监测数据、碳青霉烯类耐药菌产酶类型的流行病学特点,先给予抗菌药物经验治疗。待获知病原学检测结果后,结合先前的治疗反应,以及感染部位、严重程度、患者病理生理状况、体外药物敏感(以下简称药敏)试验结果、耐药酶型检测和抗菌药物的作用特点调整用药方案;对培养结果阴性的患者,应根据经验治疗的效果和患者个人情况调整进一步诊疗措施。抗感染药物选用时应结合其抗菌活性、药代动力学(pharmacokinetics, PK)、药效动力学(pharmacodynamics,PD)、不良反应、可及性、价格等因素综合考虑。另外,积极引流、清除感染灶,可缩短疗程、降低耐药风险,是抗感染治疗的有效辅助手段。
三 β-内酰胺酶概况
β-内酰胺酶概况 β-内酰胺酶是由细菌产生、能够水解β-内酰胺类抗菌药物的一大类酶,是细菌获得耐药性的主要机制之一。目前已鉴定出超过8 100种不同类型的酶,且数量还在持续增加。为便于研究与临床应用,目前普遍采用Ambler结构分类或Bush功能分类法对其进行分类。1980年,Ambler根据β-内酰胺酶氨基酸序列和催化机制提出结构分类法,将β-内酰胺酶划分为A、B、C、D四大类,除B类为金属β-内酰胺酶(metallo-β-lactamase,MBL)外,其余均为丝氨酸酶。在此基础下,Philippon等又对A类β-内酰胺酶进行了更细致的亚类划分,以提升分类的精确性。Bush功能分类法则从临床应用角度出发,依据底物水解谱和对抑制剂的敏感性,将β-内酰胺酶分为青霉素酶、超广谱β-内酰胺酶(extended-spectrum beta-lactamase, ESBL)、AmpC头孢菌素酶(AmpC酶)、苯唑西林酶(oxacillinase, OXA)和碳青霉烯酶(carbapenemase)等。Ambler分类法有助于揭示分子机制与耐药演化过程,Bush功能分类法则直观反映了临床药敏谱与抑制剂敏感性。本共识建议结合使用2种分类体系,以实现对β-内酰胺酶耐药机制的全面认知和对临床治疗的精准指导。 Ambler A类酶为丝氨酸酶,是数量最多、分布最广、活性范围最广的一类酶。其典型成员包括青霉素酶、ESBL及丝氨酸碳青霉烯酶。青霉素酶能水解青霉素类和部分窄谱头孢菌素。ESBL可水解第三代头孢菌素及单环类抗菌药物氨曲南,其主要由肠杆菌目细菌产生,其中大肠埃希菌和肺炎克雷伯菌最为常见,但亦可见于沙门菌属、志贺菌属、弗劳地枸橼酸杆菌、黏质沙雷菌,以及部分非发酵菌。根据编码基因的同源性,目前ESBL可分为头孢噻肟水解酶(cefotaxime-munich,CTX-M)型、Temoneira(TEM)型、去巯基型β-内酰胺酶(sulfhydryl reagent variable,SHV)型、OXA型及其他型五大类。在TEM和SHV的基础上,若进一步发生特定位点(如Met69、Arg244位点)的氨基酸突变,可形成耐酶抑制剂的β-内酰胺酶(如TEM-30和SHV-72)。通常此类酶对克拉维酸、舒巴坦及其复方制剂普遍耐药,但多数仍对他唑巴坦和阿维巴坦敏感。此外,A类酶中还包括重要的丝氨酸碳青霉烯酶,如肺炎克雷伯菌碳青霉烯酶( Klebsiella pneumoniae carbapenemase,KPC),黏质沙雷菌酶( Serratia marcescens enzyme,SME),亚胺培南水解酶(imipenem-hydrolyzing β-lactamase,IMI),非金属碳青霉烯酶-A型(non-metallo-carbapenemase-A,NMC-A)和Guiana超广谱酶(Guiana extended-spectrum β-lactamase,GES)等,其中最具代表性的是KPC。KPC广泛分布于肺炎克雷伯菌及其他肠杆菌目细菌、铜绿假单胞菌中,对碳青霉烯类表现出高度耐药性。KPC不能被传统β-内酰胺酶抑制剂(克拉维酸、他唑巴坦和舒巴坦)抑制,但可被新型β-内酰胺酶抑制剂(阿维巴坦、韦博巴坦、瑞来巴坦、度洛巴坦和他尼硼巴坦)抑制。质粒编码的KPC对临床构成严重威胁,因为它位于可移动的遗传元件中,可以发生水平传播。与KPC不同,NMC-A、IMI和SME是染色体介导型碳青霉烯酶,主要存在于阴沟肠杆菌和黏质沙雷菌中。 MBL的活性位点依赖锌离子,属于金属依赖型酶类。该类酶能够水解包括碳青霉烯类在内的几乎所有β-内酰胺类抗菌药物,但对氨曲南无水解活性,目前临床可用的MBL酶抑制剂极其有限,因此MBL给治疗带来极大挑战。根据其氨基酸序列和活性位点特征,MBL可进一步分为3个不同的亚类:B1、B2和B3。B1亚类是最重要、最广泛的亚群,包括新德里金属-β-内酰胺酶(New Delhi metallo-β-lactamase,NDM)、亚胺培南金属酶(imipenem-resistant pseudomonad,IMP)和维罗纳整合子编码的金属-β-内酰胺酶(Verona integron-encoded metallo-β-lactamase,VIM)等质粒编码的MBL,其中,NDM自2008年在印度首次被发现以来,已迅速在全球传播,广泛存在于大肠埃希菌、肺炎克雷伯菌、铜绿假单胞菌、鲍曼不动杆菌等临床重要菌种中。B2类以CphA酶为代表,主要存在于气单胞菌属,且其水解谱较窄,主要针对碳青霉烯类。B3类包括L1(来源于斯氏普罗威登斯菌)、GOB(来源于嗜麦芽窄食单胞菌)等,通常为染色体编码,广泛存在于非发酵菌。 Ambler C类β-内酰胺酶(AmpC酶)主要为染色体编码,但部分也可通过质粒获得。其活性位点同样为丝氨酸,主要水解青霉素、头孢菌素(尤其是第三代)、头霉素类,但对氨曲南水解作用有限,对第四代头孢菌素(如头孢吡肟)相对较敏感。其水解活性通常不被克拉维酸、舒巴坦和他唑巴坦抑制,因而对传统β-内酰胺酶抑制剂耐药。染色体介导的AmpC酶广泛分布于弗氏枸橼酸杆菌、摩氏摩根菌、铜绿假单胞菌和阴沟肠杆菌复合体等菌株中。染色体介导的AmpC酶的基础表达量一般较低,但菌株暴露于某些β-内酰胺类抗菌药物后可诱导其高表达。质粒介导的AmpC酶(pAmpC)常见类型包括CMY型、DHA型、ACT型、MIR型、PDC型等,可通过水平转移传播至大肠埃希菌和肺炎克雷伯菌等常见致病菌。绝大多数AmpC酶不具有碳青霉烯酶活性,然而在肺炎克雷伯菌和肠道沙门菌中,当AmpC酶过度表达,并与外膜孔蛋白缺失或外排泵过表达共同存在时,可导致碳青霉烯类耐药。 Ambler D类β-内酰胺酶(OXA型)是一类以丝氨酸为活性位点的β-内酰胺酶,因其对苯唑西林具有较强水解活性而得名。该类酶在结构和功能上具有显著多样性,且水解谱差异较大。多数OXA型酶能水解青霉素类和头孢菌素类,部分类型(如OXA-23、OXA-48)还具有碳青霉烯酶活性,对临床治疗构成严重威胁。在抑制剂敏感性方面,大多数OXA型酶对克拉维酸、舒巴坦、他唑巴坦耐药,仅少数(如OXA-48)对阿维巴坦、度洛巴坦、他尼硼巴坦表现出一定敏感性,OXA-23、OXA-58则对度洛巴坦表现出高度敏感性。OXA型最早在不动杆菌属中被发现,如OXA-23、OXA-24/40、OXA-51、OXA-58等,这些类型已成为鲍曼不动杆菌碳青霉烯类耐药的主要机制之一。在肠杆菌目细菌中,最具代表性的为OXA-48及其变体(OXA-162、OXA-181、OXA-232等),常通过质粒介导传播,已在欧洲、中东、南亚等地区广泛流行,并逐渐扩散至全球。
四 耐药菌感染的诊断管理
耐药菌感染的诊断管理 耐药菌感染的诊断管理是一项多学科协作的临床决策过程,本共识提出以下三项核心原则。①以协助临床医师判断为中心:所有诊断技术的最终目的是为临床医师提供及时、可操作的决策依据,而非替代其综合判断。②以患者为中心:治疗的焦点是感染耐药菌的患者,而非单纯的病原体。必须综合评估患者的免疫状态、基础疾病、感染部位与严重程度等个体化因素。③整合实验室证据:微生物学、药敏及分子生物学结果是关键参考,但必须结合临床情况进行解读与整合,审慎应用于治疗决策。 在耐药菌感染的精准诊断中,传统药敏试验(如纸片扩散法、微量肉汤稀释法)作为判定耐药性的金标准,为目标性治疗提供根本依据,但其耗时较长(通常2~3 d),在危重感染初始治疗阶段,仍需依赖经验性用药。 β-内酰胺酶的酶型检测是明确耐药机制、指导精准选药的重要补充。具体方法如下。 ① ESBL检测:美国临床和实验室标准协会(Clinical and Laboratory Standards Institute,CLSI)推荐的表型确证试验。若头孢他啶或头孢噻肟在联合克拉维酸后,其抑菌圈直径比单药增加≥5 mm或最低抑菌浓度(minimal inhibitory concentration, MIC)出现3个或以上倍比稀释度的降低时,可判为阳性。 ② AmpC酶检测:对第三代头孢菌素和头霉素类(如头孢西丁)同时耐药,但头孢吡肟敏感的菌株,被认为可能表达AmpC酶。可通过头孢西丁三维试验或基于硼酸/氯唑西林的抑制试验进行表型筛选。 ③碳青霉烯酶表型检测方法主要包括:Carba NP试验,通过检测细菌对亚胺培南的水解能力判断是否产碳青霉烯酶,操作简单但可能漏检部分类型。改良碳青霉烯灭活试验(modified carbapenem inactivation method,mCIM)和乙二胺四乙酸协同碳青霉烯灭活试验(ethylene diamine tetraacetic acid-carbapenem inactivation method,eCIM)可区分产碳青霉烯酶的类型。若eCIM阳性,提示产金属酶;若eCIM阴性,则提示产丝氨酸碳青霉烯酶。 分子生物学检测技术在耐药菌感染的诊断中也发挥着越来越重要的作用。高通量测序、PCR及数字PCR等分子生物学技术已在临床诊断中广泛应用,其不仅可覆盖微生物的基因组,也可覆盖携带耐药/毒力基因的质粒。由于分子生物学技术鉴定出的耐药基因无法与病原体直接且明确关联,所以耐药基因的检测结果需审慎解读,不能直接替代表型药敏作为用药依据。 另外,联合药敏试验通过在体外筛选具有协同作用的药物组合(如多黏菌素、替加环素等与β-内酰胺类药物联用),可为临床制订联合用药方案提供依据。但需注意体外协同性并非临床治疗成功的保证,需结合患者具体情况综合判断。
五 新型β-内酰胺酶抑制剂复方制剂
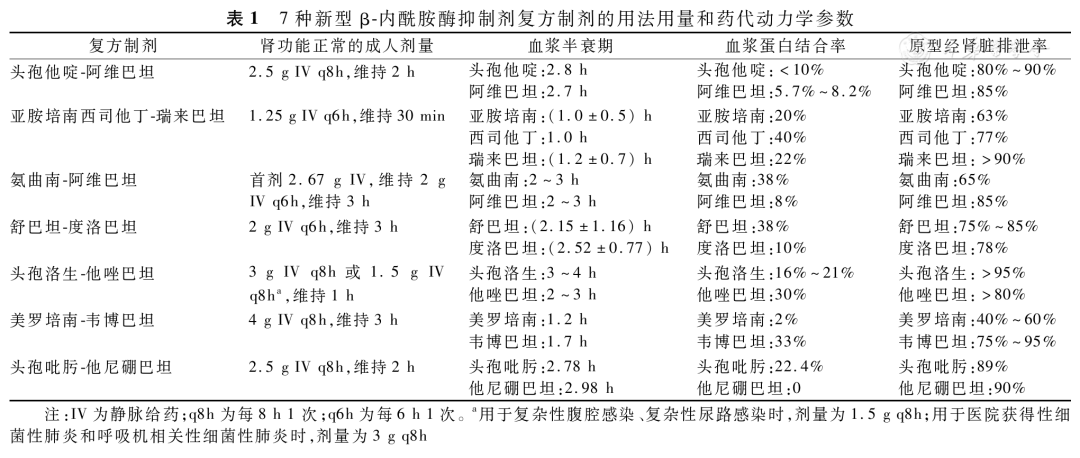
新型β-内酰胺酶抑制剂复方制剂 7种主要具有Ⅲ期临床研究结果的新型β-内酰胺酶抑制剂复方制剂的抗菌活性、作用机制、耐药率等有一定差异,将在下文中详细描述。其在肾功能正常的成人中的用法用量和PK参数详见表1。  (一)头孢他啶-阿维巴坦(ceftazidime-avibactam) 1.作用机制和抗菌活性: 头孢他啶通过与青霉素结合蛋白(penicillin binding protein,PBP)结合,抑制细菌细胞壁肽聚糖合成,导致细菌裂解死亡,而阿维巴坦通过与β-内酰胺酶活性中心丝氨酸共价结合形成可逆但稳定的酶-抑制剂复合体,从而阻止头孢他啶被水解。阿维巴坦可以有效抑制Ambler A类(如KPC、ESBL)、C类(如AmpC)、D类(如OXA-48)酶;但对MBL(如NDM、VIM、IMP)无效。头孢他啶-阿维巴坦具有广谱的抗菌活性,尤其是针对多重耐药的革兰阴性菌,对产ESBL、AmpC、KPC和OXA-48型酶的肠杆菌目细菌表现出很高的抗菌活性;对多重耐药的铜绿假单胞菌(multidrug-resistant Pseudomonas aeruginosa,MDR-PA),包括CRPA具有一定的抗菌活性;对洋葱伯克霍尔德菌复合群(包括多重耐药和泛耐药菌株)有效;对嗜麦芽窄食单胞菌活性有限,但与氨曲南联合时可恢复对嗜麦芽窄食单胞菌的活性。头孢他啶-阿维巴坦对产MBL的革兰阴性菌无抗菌活性,对鲍曼不动杆菌的活性有限,阿维巴坦不能改善对头孢他啶耐药的鲍曼不动杆菌的敏感性。 在一项评估头孢他啶-阿维巴坦对多重耐药的肠杆菌目和铜绿假单胞菌体外药敏的大型多中心研究中,超过36 000株肠杆菌目分离株对头孢他啶-阿维巴坦的敏感率为99.9%,其中包括99.6%的ESBL阳性分离株和97.5%的CRE分离株;在近8 000株铜绿假单胞菌临床分离株中,头孢他啶-阿维巴坦的总体敏感率为97.1%,其中包括81.3%的头孢他啶耐药菌株和71.8%的对常规抗假单胞菌β-内酰胺类药物耐药的菌株。中国细菌耐药监测网(China Antimicrobial Surveillance Network, CHINET)2024年细菌耐药监测结果显示,产KPC的碳青霉烯耐药的肺炎克雷伯菌(carbapenem-resistant Klebsiella pneumoniae,CRKP)对头孢他啶-阿维巴坦的敏感率为98.7%,CRPA对头孢他啶-阿维巴坦的敏感率为81.9%。 2.耐药率及耐药机制: 在2项随机对照试验(RECAPTURE和REPROVE研究)中,头孢他啶-阿维巴坦治疗期间出现耐药的患者比例较低(1.6%~2%)。在真实世界观察性研究中,特别是在治疗产KPC的肺炎克雷伯菌引起的感染时,头孢他啶-阿维巴坦治疗期间出现耐药的患者比例约为10%~14%。这种耐药性通常在治疗开始后10~19 d内出现。一项针对革兰阴性菌对头孢他啶-阿维巴坦耐药的全球荟萃分析显示,头孢他啶-阿维巴坦在革兰阴性菌中的耐药率从2015年至2020年的5.6%(来自221 278株革兰阴性杆菌分离株的结果)显著上升至2021年至2024年的13.2%(来自285 978株分离株的结果),其中非发酵革兰阴性杆菌的耐药率为25.8%,肠杆菌目为6.1%。地区分析显示亚洲的耐药率为19.3%,非洲为13.6%,欧洲为11%,南美洲为6.1%,北美洲为5.3%。 头孢他啶-阿维巴坦的耐药机制复杂多样,既包括细菌的天然耐药,也包括在治疗压力下出现的获得性耐药。最常见的天然耐药机制是存在MBL和某些D类β-内酰胺酶(肠杆菌目中的OXA-10或OXA-48型除外),最常见的获得性耐药机制是blaKPC基因突变,通过点突变、插入或缺失突变改变KPC的构象,使之增强与头孢他啶的结合能力,降低与阿维巴坦的结合能力,从而降低了阿维巴坦的抑酶能力,最终导致耐药。其他耐药机制包括外排泵活性增强、膜孔蛋白缺失,以及blaKPC基因表达上调,PBP的点突变也与头孢他啶耐药相关,且无法被阿维巴坦逆转。此外,阿维巴坦被证实可诱导某些肠杆菌和铜绿假单胞菌过量表达AmpC酶,可能导致超出酶抑制剂的结合能力,从而导致头孢他啶-阿维巴坦的MIC显著升高。 (二)亚胺培南西司他丁-瑞来巴坦 (imipenem-cilastatin-relebactam) 1.作用机制和抗菌活性: 亚胺培南属于碳青霉烯类抗菌药物,通过与PBP2和PBP1b结合,抑制细菌细胞壁肽聚糖合成,导致细菌裂解死亡,发挥广谱抗菌作用;西司他丁是一种肾去氢肽酶抑制剂,保护亚胺培南不被肾脏代谢,并降低亚胺培南的肾毒性,无抗菌活性;瑞来巴坦是一种非β-内酰胺二氮杂双环辛烷(diazabicyclooctane,DBO)抑制剂,保护亚胺培南不被Ambler A类(ESBL、KPC)和C类(AmpC)β-内酰胺酶降解,三药协同可以增强对耐药革兰阴性菌(尤其是产酶菌)的抗菌活性。瑞来巴坦对Ambler B类碳青霉烯酶、OXA-48型酶无活性。摩根菌属、变形杆菌属和普罗威登斯菌属对亚胺培南的敏感性天然较低,因此对亚胺培南-瑞来巴坦也具有较低敏感性,此外,瑞来巴坦不能抑制OXA-23,故无法增强亚胺培南对鲍曼不动杆菌的抗菌活性。 一项关于革兰阴性菌分离株AMR趋势的全球监测计划SMART研究中,2015年至2018年,我国7个地理区域的22家医院收集的8 781株肠杆菌目分离株(其中大肠埃希菌占53.3%,肺炎克雷伯菌占33.6%,阴沟肠杆菌占6.2%)对亚胺培南西司他丁-瑞来巴坦的总体敏感率为95.2%,其中腹腔感染、呼吸道感染和尿路感染来源菌株的敏感率分别为95.8%、91.4%和96.6%,此外,亚胺培南西司他丁-瑞来巴坦对亚胺培南不敏感肠杆菌目菌株的总体敏感性恢复率达66.3%。该研究同时在我国21个中心(来自7个地理区域)共收集了1 886株铜绿假单胞菌和1 889株鲍曼不动杆菌分离株,对于铜绿假单胞菌,采用CLSI折点(MIC≤2 mg/L)时,亚胺培南西司他丁-瑞来巴坦的总体敏感率为84.2%,而亚胺培南仅为55.7%;亚胺培南不敏感菌株对亚胺培南西司他丁-瑞来巴坦的敏感率达64.4%;对于多重耐药菌株,瑞来巴坦能使亚胺培南的敏感率从25.2%提升至65.8%。 2.耐药率及耐药机制: 在表达KPC的假单胞菌属和克雷伯菌属中,亚胺培南西司他丁-瑞来巴坦耐药发生率极低。在一项针对2017年至2022年我国广州市3所三级医院的住院患者分离的782株产KPC的肺炎克雷伯菌株的体外药敏研究中,仅发现6株(0.8%)对亚胺培南西司他丁-瑞来巴坦耐药,其中5株对头孢他啶-阿维巴坦和亚胺培南西司他丁-瑞来巴坦同时耐药。研究表明,blaKPC突变与头孢他啶-阿维巴坦高耐药有关,而膜孔蛋白OmpK36突变和blaKPC表达升高存在协同效应,这可能是亚胺培南西司他丁-瑞来巴坦耐药的重要机制。不产碳青霉烯酶的铜绿假单胞菌分离株对亚胺培南西司他丁-瑞来巴坦的耐药机制主要归因于PBP的特定变异、OmpK35的破坏和OmpK36的突变,这些膜孔蛋白的功能丧失、突变或缺失显著减少细菌对亚胺培南的摄取,导致亚胺培南西司他丁-瑞来巴坦的敏感率降低。 (三)氨曲南-阿维巴坦(aztreonam-avibactam) 1.作用机制和抗菌活性: 氨曲南属于单环β-内酰胺类抗菌药物,通过与PBP结合抑制细菌肽聚糖细胞壁合成,导致细菌细胞裂解和死亡。氨曲南对MBL稳定,不会被金属酶水解,但产金属酶的病原菌通常携带其他β-内酰胺酶,可以灭活氨曲南。阿维巴坦可抑制Ambler A类、C类和某些D类(如OXA-48)酶,避免氨曲南被此类酶水解,从而恢复氨曲南的抗菌活性。氨曲南-阿维巴坦对肠杆菌目细菌、嗜麦芽窄食单胞菌均具有高度抗菌活性,对铜绿假单胞菌具有一定的抗菌活性,但对鲍曼不动杆菌、革兰阳性菌和厌氧菌无抗菌活性。 国内外多篇大样本体外研究证实氨曲南-阿维巴坦对CRE的体外敏感率为92.5%~100%。2023年全球多中心体外监测数据显示氨曲南-阿维巴坦对1 098株CRE,无论产KPC、MBL、OXA-48还是不产碳青霉烯酶的菌株,敏感率均在97.6%以上(MIC≤8 mg/L),显著优于头孢他啶-阿维巴坦(68%)和美罗培南-韦博巴坦(61%)。全国细菌耐药监测网(China Antimicrobial Resistance Surveillance System,CARSS)报道的我国31个省份151所医疗机构2021年1月至6月临床分离的4 314株CRKP和946株CRE(除外CRKP)的药敏结果显示,氨曲南-阿维巴坦对产和不产碳青霉烯酶的CRKP菌株敏感率均>94%,对产KPC、产MBL、不产碳青霉烯酶的CRE(除外CRKP)敏感率分别为98.5%、96.3%、82.1%。氨曲南-阿维巴坦对铜绿假单胞菌的活性欠佳。来自40个国家的11 842株铜绿假单胞菌临床分离株中,无论是否产MBL,氨曲南-阿维巴坦的90%最低抑菌浓度(90% minimum inhibitory concentration, MIC90)均为32 μg/mL。 2.耐药率及耐药机制: 国内外多篇大样本体外研究证实氨曲南-阿维巴坦对CRE的体外耐药率为0~7.5%。肠杆菌目细菌对氨曲南-阿维巴坦产生耐药涉及多种机制,主要包括β-内酰胺酶的过度产生或突变,导致氨曲南的水解速率增加和阿维巴坦的亲和力降低。ESBL和AmpC β-内酰胺酶的过表达可以更有效地水解氨曲南,使其失效;而β-内酰胺酶的某些突变(例如活性位点结构扩大)会降低阿维巴坦抑制这些酶的能力。此外,PBP3突变和外排泵的激活也参与耐药。肺炎克雷伯菌的外膜孔蛋白(OmpK35、OmpK36、OmpK37)的结构改变或数量减少也是导致细菌对氨曲南敏感性下降的原因。在膜孔蛋白缺陷的背景下,碳青霉烯酶基因(例如blaKPC-2 )的过表达进一步加剧了耐药水平的升高。AcrAB-TolC外排泵的过表达和OmpK35产生减少等机制也被证明会导致对氨曲南-阿维巴坦耐药。 (四)舒巴坦-度洛巴坦 (sulbactam-durlobactam) 1.作用机制和抗菌活性: 舒巴坦是一种不可逆竞争性β-内酰胺酶抑制剂,是A类丝氨酸β-内酰胺酶抑制剂,更重要的是,其本身也可通过与鲍曼不动杆菌的PBP1和PBP3饱和结合,阻止细菌细胞壁的合成过程,从而产生对鲍曼不动杆菌的杀菌活性,而其他β-内酰胺酶抑制剂均无此作用。度洛巴坦是一种新型DBO结构的非β-内酰胺类β-内酰胺酶抑制剂,能抑制丝氨酸β-内酰胺酶,显著降低舒巴坦被这些酶水解的风险,从而使舒巴坦能够更有效地到达PBP,发挥其杀菌作用。相较于其他DBO结构的β-内酰胺酶抑制剂,度洛巴坦不仅增加了对D类酶的抑制作用,而且进一步提升了对A类和C类酶的抑制效果,对目前绝大部分D类碳青霉烯酶OXA家族的β-内酰胺酶(包括OXA-23、OXA-24/40、OXA-51、OXA-58、OXA-48等)均表现出强效抑制活性,而鲍曼不动杆菌对β-内酰胺类药物产生耐药的最常见原因即是产生D类酶(主要是OXA-23)。度洛巴坦是目前唯一能有效抑制这些OXA酶的临床可用酶抑制剂。度洛巴坦通过与这些酶的活性中心紧密结合,使其失活,从而恢复舒巴坦及其联用抗菌药物的抗菌活性。国内外4项多中心研究显示,6 684株鲍曼不动杆菌分离株(其中包括近4 000株CRAB)中,舒巴坦-度洛巴坦的敏感率均>96%,耐药率均<2.5%,50%最低抑菌浓度(50% minimum inhibitory concentration,MIC50)和MIC90分别为1 μg/mL和2 μg/mL。需要注意的是,度洛巴坦不能抑制MBL(如NDM、VIM、IMP),因此治疗产MBL的CRAB感染时,应考虑其他治疗方案。 2.耐药率及耐药机制: 根据2024年CHINET数据,鲍曼不动杆菌对舒巴坦-度洛巴坦的耐药率为2.3%。现有报道显示,CARB对舒巴坦-度洛巴坦产生高水平耐药的主要原因包括产MBL及PBP3突变。另有体外研究发现,AdeIJK外排泵对度洛巴坦的外排作用可能在特定CRAB分离株中参与了舒巴坦-度洛巴坦耐药性的形成。 (五)头孢洛生-他唑巴坦 (ceftolozane-tazobactam) 1.作用机制和抗菌活性: 头孢洛生是一种新型的第三代头孢菌素,其通过与PBP特异性结合,破坏细菌细胞壁合成,从而发挥抗菌作用。头孢洛生对革兰阴性菌(尤其是铜绿假单胞菌)具有很高的亲和力,能够克服铜绿假单胞菌常见的外排泵、膜孔蛋白缺失及AmpC过表达等耐药机制。他唑巴坦是一种传统β-内酰胺酶抑制剂,可保护头孢洛生不被水解,对碳青霉烯酶(如KPC、NDM)活性有限,在产ESBL的肠杆菌目菌株中仍能显著扩大头孢洛生的抗菌谱,但通常不建议将其用于治疗产AmpC酶的肠杆菌目细菌感染。 头孢洛生-他唑巴坦最具优势的特点是对铜绿假单胞菌的抗菌活性强,尤其对多重耐药和广泛耐药的铜绿假单胞菌菌株依然保持着很高的活性;对肠杆菌目细菌也具有广谱抗菌活性,尤其对于产ESBL的菌株同样有效。在SMART研究中,来自美国的监测数据显示,铜绿假单胞菌对头孢洛生-他唑巴坦的敏感率可高达97%,高于头孢他啶-阿维巴坦(95%)和亚胺培南西司他丁-瑞来巴坦(91%),且该药物对78%的MDR-PA和74%的难治性耐药铜绿假单胞菌(difficult-to-treat resistance Pseudomonas aeruginosa,DTR-PA)有效;来自中国的监测数据显示,铜绿假单胞菌对头孢洛生-他唑巴坦的敏感率可高达81.9%,68.6%的MDR-PA、59.6%的泛耐药铜绿假单胞菌对头孢洛生-他唑巴坦保持敏感,同时,肠杆菌目细菌对头孢洛生-他唑巴坦的总体敏感率为79.5%,其中大肠埃希菌和肺炎克雷伯菌的敏感率分别为89.3%和68.0%,产ESBL且非碳青霉烯类耐药菌株对头孢洛生-他唑巴坦的敏感性较高,肠杆菌目细菌、大肠埃希菌和肺炎克雷伯菌的敏感率分别为81.0%、87.9%和72.3%。头孢洛生-他唑巴坦对金黄色葡萄球菌、肠球菌属、不动杆菌属和艰难梭菌等活性有限或无活性,对某些链球菌,如肺炎链球菌和化脓性链球菌组,以及部分厌氧菌如脆弱拟杆菌、产气荚膜梭菌和普氏菌属等具有中等程度的活性。 2.耐药率及耐药机制: SMART研究显示,2016年至2021年全球多中心分离获得的铜绿假单胞菌临床分离株对头孢洛生-他唑巴坦的耐药率为7.9%,该耐药现象在东欧地区(16.7%)和拉丁美洲(12.2%)最为普遍。在非随机研究中,有系列病例报道显示在头孢洛生-他唑巴坦治疗过程中铜绿假单胞菌对其产生耐药的发生率为9.7%~14%,此外,DTR-PA感染复发后,再次使用头孢洛生-他唑巴坦发生细菌耐药的风险较高。AmpC酶[在铜绿假单胞菌中也称为铜绿假单胞菌源性头孢菌素酶(Pseudomonas-derived cephalosporinase,PDC)]的过表达和基因突变导致结构修饰是头孢洛生-他唑巴坦最常见的耐药机制,PDC编码基因发生氨基酸替换、插入或缺失会导致对头孢洛生的水解效率提高,从而导致细菌耐药,这些基因改变最常发生在PDC基因的一个特定区域——Ω环的内部或附近。鉴于他唑巴坦对碳青霉烯酶无抑制活性,产碳青霉烯酶也是导致铜绿假单胞菌对头孢洛生-他唑巴坦产生耐药的机制之一。 (六)头孢吡肟-他尼硼巴坦 (cefepime-taniborbactam) 1.作用机制和抗菌活性: 头孢吡肟作用于细菌细胞壁合成的PBP,破坏细胞壁形成,从而发挥杀菌作用。他尼硼巴坦通过与β-内酰胺酶活性位点的丝氨酸形成可逆共价键来抑制丝氨酸酶的活性;通过竞争性抑制底物与MBL结合从而抑制MBL的活性。 头孢吡肟-他尼硼巴坦显示出对CRE和CRPA的体外高活性,包括产NDM、VIM、KPC、AmpC、OXA-48和ESBL的菌株。其对嗜麦芽窄食单胞菌和伯克霍尔德菌复合体具有体外活性,对鲍曼不动杆菌及产IMP的CRE活性较弱。全球耐药性监测项目(Global Evaluation of Antimicrobial Resistance via Surveillance,GEARS)显示,头孢吡肟-他尼硼巴坦对肠杆菌目细菌的敏感率高达99.5%。在耐药的肠杆菌目细菌中,头孢吡肟-他尼硼巴坦对多重耐药的菌株和头孢洛生-他唑巴坦耐药菌株的抑制率超过95%,对美罗培南-韦博巴坦耐药和头孢他啶-阿维巴坦耐药菌株的抑制率超过80%;头孢吡肟-他尼硼巴坦对铜绿假单胞菌的敏感率为96.5%;在耐药的铜绿假单胞菌菌株中,头孢吡肟-他尼硼巴坦对美罗培南耐药、美罗培南-韦博巴坦耐药、头孢他啶-阿维巴坦和头孢洛生-他唑巴坦耐药的菌株的抑制率分别超过了85%、80%和70%。尤其在产NDM的CRE菌株中,头孢吡肟-他尼硼巴坦的抑制率达84.6%。 2.耐药率及耐药机制: 体外研究结果发现,在产NDM的CRE菌株中,头孢吡肟-他尼硼巴坦的耐药率约22.5%。肠杆菌目细菌的全基因组测序研究发现,与头孢吡肟-他尼硼巴坦的MIC≥16 mg/L相关的潜在机制包括产IMP型碳青霉烯酶、PBP3突变、外膜孔蛋白缺陷,以及外排泵上调。在肺炎克雷伯菌中,全基因组测序鉴定出OmpA、OmpR、OmpK35和OmpK36等膜孔蛋白的突变与头孢吡肟-他尼硼巴坦MIC升高相关,且耐药菌株同时携带NDM-1或NDM-5、CTX-M-15及1种或多种D类酶。在头孢吡肟-他尼硼巴坦MIC升高的铜绿假单胞菌全基因组测序显示,同时存在IMP型酶、PBP3突变、外排泵高表达及AmpC(PDC)过表达等多种耐药机制。 (七)美罗培南-韦博巴坦 (meropenem-vaborbactam) 1.作用机制和抗菌活性: 美罗培南能够穿透大多数革兰阳性菌和革兰阴性菌的细胞壁,与PBP靶点结合。美罗培南对大多数由革兰阴性菌和革兰阳性菌产生的β-内酰胺酶(包括青霉素酶和AmpC酶)具有稳定性,但可被碳青霉烯酶水解。韦博巴坦是一种环状硼酸β-内酰胺酶抑制剂,可保护美罗培南免受产A类丝氨酸β-内酰胺酶(如KPC)的降解,恢复美罗培南对产A类丝氨酸碳青霉烯酶菌株的活性。 体外证实美罗培南-韦博巴坦对产KPC及SME、IMI等其他A类碳青霉烯酶和AmpC酶的肠杆菌目细菌均有效;但对B类MBL(如NDM、VIM、IMP)及D类(如OXA-48)碳青霉烯酶无活性。韦博巴坦不能增强美罗培南对铜绿假单胞菌、鲍曼不动杆菌的活性。 2.耐药率及耐药机制: 美罗培南-韦博巴坦对产KPC的CRE体外敏感率为95.3%~99.1%,对产B类酶或者D类酶的CRE无抗菌活性,对膜孔蛋白突变伴外排泵过表达的革兰阴性菌亦无活性。研究证实,该药物对OmpK35与OmpK36膜孔蛋白失活及外排泵组成蛋白AcrA过表达菌株的抗菌活性显著降低。美罗培南-韦博巴坦耐药菌株通过产MBL(MIC为16~≥64 mg/L),或OmpK37膜孔蛋白表达降低和(或)AcrAB-TolC外排泵系统高表达(MIC为16 mg/L)导致耐药。因OmpK35与OmpK36表达缺失导致的美罗培南-韦博巴坦耐药菌株,其MIC值较仅携带相同β-内酰胺酶而无膜孔蛋白改变的菌株升高8~16倍。此外,存在OmpK35基因突变或同时携带blaKPC与blaOXA-48样/blaNDM-1基因的菌株,其美罗培南-韦博巴坦的MIC值均显著升高(≥8 mg/L)。
六 基于药敏及酶型检测的新型β-内酰胺 酶抑制剂复方制剂的精准抗感染方案
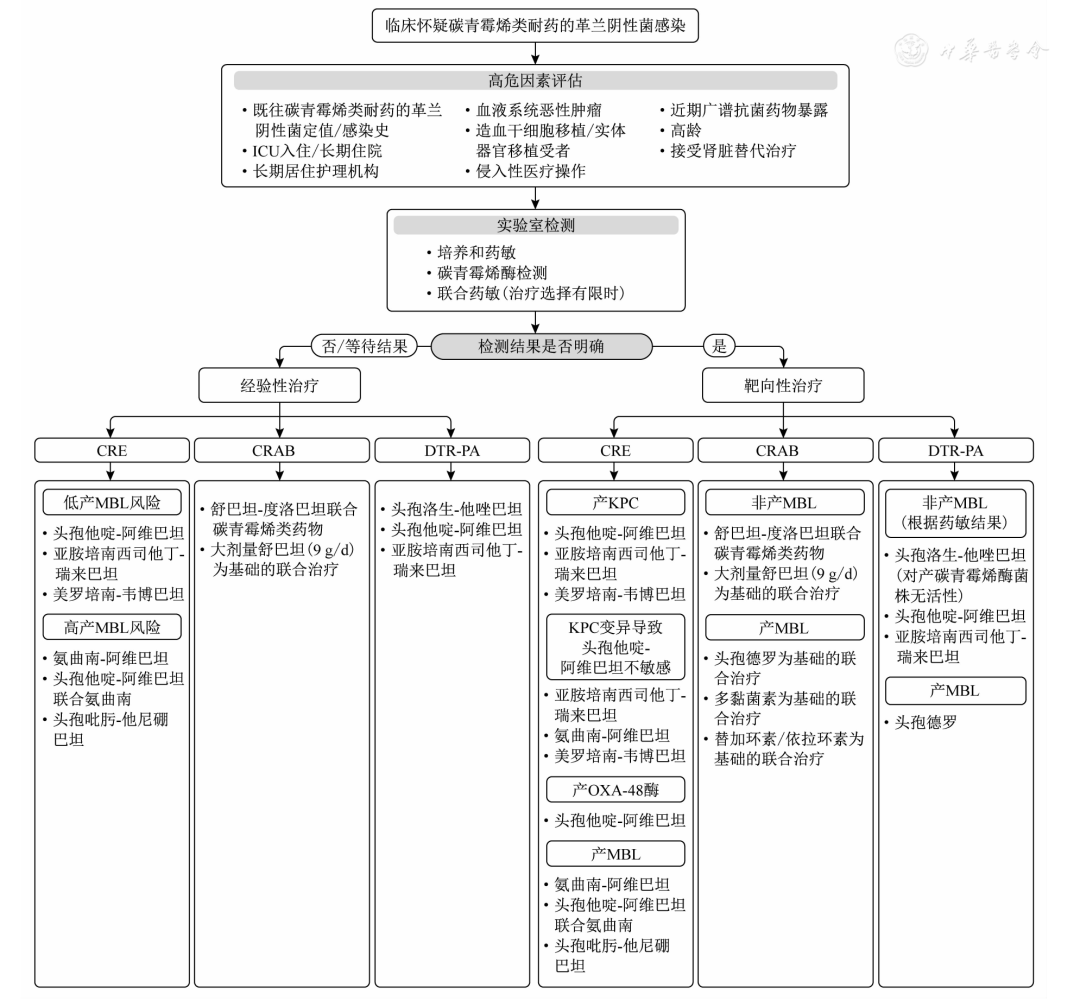
基于药敏及酶型检测的新型β-内酰胺 酶抑制剂复方制剂的精准抗感染方案 临床问题1:碳青霉烯类耐药革兰阴性菌的治疗是否需要进行表型药敏和酶型检测? 推荐意见1:碳青霉烯类耐药革兰阴性菌的治疗推荐积极进行表型药敏和酶型检测,并动态随访。(证据分级5,推荐强度:强推荐) 证据总结:细菌产生β-内酰胺酶是最常见且最重要的耐药机制,在革兰阴性菌中尤为突出。β-内酰胺酶的检测不仅是诊断耐药菌感染、揭示其耐药机制的基石,更是指导个体化精准治疗、避免无效用药、改善患者临床结局的核心依据。由于不同类型的β-内酰胺酶具有不同的底物谱,所以精确鉴定酶的类别能够预测细菌对特定β-内酰胺类抗菌药物的耐药情况。 头孢他啶-阿维巴坦对产ESBL、AmpC、KPC和OXA-48型酶的肠杆菌目细菌表现出很高的抗菌活性,但对产MBL的革兰阴性菌无抗菌活性。亚胺培南西司他丁-瑞来巴坦、美罗培南-韦博巴坦对产ESBL、AmpC、KPC的肠杆菌目细菌,以及产KPC和AmpC酶过表达的铜绿假单胞菌均表现出强大的活性。有体外研究发现,对于某些KPC亚型突变导致头孢他啶-阿维巴坦不敏感的CRKP中,亚胺培南西司他丁-瑞来巴坦仍保留有较高的敏感性,但其对产D类OXA-48样碳青霉烯酶及MBL(如NDM、VIM、IMP等)的菌株无抗菌活性。头孢洛生-他唑巴坦对铜绿假单胞菌具有很强的抗菌活性,对肠杆菌目细菌也具有广谱抗菌活性,尤其对于产ESBL的菌株同样有效,但对产AmpC酶的肠杆菌目细菌活性有限,对产碳青霉烯酶的菌株无效。氨曲南-阿维巴坦则对产NDM、VIM和IMP等MBL和(或)表达KPC、ESBL、AmpC或OXA-48的肠杆菌目细菌(如大肠埃希菌、肺炎克雷伯菌)具有强大的活性,及时弥补了临床上对于产金属酶的耐药菌感染的治疗难点,同时也有体外研究表明氨曲南-阿维巴坦对于某些KPC亚型突变导致头孢他啶-阿维巴坦不敏感的CRKP也具有较高的敏感性。头孢吡肟-他尼硼巴坦是一种新型的可以覆盖部分MBL(不包括IMP)的β-内酰胺酶抑制剂复方制剂,对CRE和CRPA具有体外高活性,包括产NDM、VIM、KPC、AmpC、OXA-48和ESBL的菌株。舒巴坦-度洛巴坦则针对CRAB,对于产D类OXA家族β-内酰胺酶(包括OXA-23、OXA-24/40、OXA-51、OXA-58等)的鲍曼不动杆菌有强效的抗菌活性,D类酶正是鲍曼不动杆菌对β-内酰胺类药物产生耐药的最常见原因。但产MBL的CRAB通常对舒巴坦-度洛巴坦耐药。 由此可见,随着新型β-内酰胺酶抑制剂的陆续上市,其临床应用高度依赖于对β-内酰胺酶类型的准确识别,精确的β-内酰胺酶检测使得"精准医疗"在抗感染领域成为可能。 临床问题2:当碳青霉烯酶检测不可及,碳青霉烯类耐药革兰阴性菌感染的经验性治疗应如何考虑? 推荐意见2:当碳青霉烯酶检测不可及,治疗碳青霉烯类耐药革兰阴性菌感染时,经验性治疗应基于当地的流行病学、患者的感染部位、严重程度和基础疾病综合评估。(证据分级5,推荐强度:强推荐) 证据总结:产碳青霉烯酶是CRE最重要的耐药机制,KPC、NDM、VIM、IMP和OXA-48家族酶是全球流行的五大主要碳青霉烯酶,来自美国的流行病学数据显示产碳青霉烯酶菌株占所有CRE的35%~59%,其中86%~92%为KPC;来自中国的大规模数据则显示CRKP分离株中98.2%产碳青霉烯酶,其中KPC占89.4%。当碳青霉烯酶检测不可及,对于CRE的治疗可选择头孢他啶-阿维巴坦、亚胺培南西司他丁-瑞来巴坦及美罗培南-韦博巴坦等对KPC有强大的抑制能力的β-内酰胺酶抑制剂复方制剂。以下情况需考虑患者存在感染产MBL细菌的高风险:一是过去12个月内在MBL高流行地区有住院史,或既往的培养结果曾鉴定出产MBL的菌株;二是特殊人群中CRE携带MBL的比例高,如血液系统恶性肿瘤患者感染的CRKP菌株携带MBL的比例可达17%~24%;儿童CRKP感染患者MBL携带率远高于成人患者,可达60%~70%;中国碳青霉烯类耐药的大肠埃希菌、阴沟肠杆菌分离株中产NDM比例可高达75%,上述患者的经验性治疗可考虑覆盖产MBL的CRE,可选择的新型β-内酰胺酶抑制剂复方制剂包括氨曲南-阿维巴坦、头孢他啶-阿维巴坦联合氨曲南、头孢吡肟-他尼硼巴坦等。 推荐对CRE感染患者进行动态的病原学随访,如在治疗过程中出现感染复发,尤其对于接受过头孢他啶-阿维巴坦治疗的患者,需要高度警惕KPC基因突变导致亚型变异,可选择更换β-内酰胺酶抑制剂复方制剂为氨曲南-阿维巴坦、亚胺培南西司他丁-瑞来巴坦、美罗培南-韦博巴坦等(详见推荐意见4)。 铜绿假单胞菌的耐药机制复杂,通常是由包括产碳青霉烯酶在内的多种耐药机制共同作用的结果,在全球多中心的流行病学研究中,CRPA中的碳青霉烯酶基因携带率为22%~33%,这使得CRPA、DTR-PA的经验性治疗变得更为复杂。对于碳青霉烯类不敏感,但对传统β-内酰胺类药物(例如头孢他啶、头孢吡肟等)保持敏感的CRPA感染,仍应使用敏感的传统β-内酰胺类药物,并建议使用大剂量、延长输注时间的给药方式。对于新型β-内酰胺酶抑制剂复方制剂的应用,现有临床研究主要聚焦在与传统药物(如碳青霉烯类、多黏菌素、氨基糖苷类等)的比较,且通常针对MDR-PA而非DTR-PA。一项纳入200例耐药铜绿假单胞菌感染患者的观察性研究显示,接受头孢洛生-他唑巴坦治疗的患者组有81%获得良好临床结局,优于接受多黏菌素或氨基糖苷类治疗方案的患者组(61%)。对5项Ⅲ期临床随机对照试验(randomized controlled trial,RCT)的汇总数据显示,95例MDR-PA感染患者中,头孢他啶-阿维巴坦治疗组和碳青霉烯治疗组分别有57%和54%的患者获得良好临床应答。一项观察性研究比较了接受头孢洛生-他唑巴坦与头孢他啶-阿维巴坦治疗的各100例MDR-PA感染患者,两组病死率均约为40%。另有一项纳入24例对亚胺培南不敏感的铜绿假单胞菌感染患者的临床试验显示,接受亚胺培南西司他丁-瑞来巴坦治疗的患者中有81%获得良好临床应答,而接受亚胺培南-西司他丁联合多黏菌素治疗的患者中有63%获得良好临床应答。基于上述现有的临床研究数据,头孢洛生-他唑巴坦、头孢他啶-阿维巴坦和亚胺培南西司他丁-瑞来巴坦是对于DTR-PA感染经验性治疗可选择的新型β-内酰胺酶抑制剂复方制剂。此外,新型铁载体类头孢菌素头孢德罗对碳青霉烯类不敏感铜绿假单胞菌的敏感率可高达90%以上,且对产MBL的铜绿假单胞菌仍有效。 鲍曼不动杆菌对碳青霉烯产生耐药的最常见原因是产生D类酶,尤其是OXA-23酶。CRAB感染首选含舒巴坦制剂的联合治疗方案,包括舒巴坦-度洛巴坦联合碳青霉烯类药物(可选亚胺培南-西司他丁、美罗培南),大剂量舒巴坦(每日9 g舒巴坦,可选头孢哌酮-舒巴坦、氨苄西林-舒巴坦及单剂型舒巴坦)联合至少1种对鲍曼不动杆菌具有抗菌活性的药物,可作为联合用药的包括多黏菌素、新型四环素类抗菌药物(米诺环素、替加环素、依拉环素)、铁载体头孢菌素头孢德罗(详见推荐意见7)。 除新型β-内酰胺酶抑制剂复方制剂以外,碳青霉烯类耐药的革兰阴性菌感染经验性治疗可选用的药物还包括以下几种。 头孢德罗是一种新型的铁载体头孢菌素,具有能够穿过革兰阴性菌细胞膜(包括多重耐药菌)的独特作用机制:与铁离子(Fe3+)结合,通过细菌铁转运蛋白被主动运输至细菌细胞内,在作用部位形成高浓度的药物,使其在外排泵上调的情况下仍保持活性。其对β-内酰胺酶高度稳定:对丝氨酸型(KPC、OXA等)和金属碳青霉烯酶(VIM、IMP、NDM等)均稳定,因此对产A类丝氨酸β-内酰胺酶、AmpC酶、MBL和OXA酶的肠杆菌目、假单胞菌属和不动杆菌属分离株均保持强效抗菌活性。在CRE感染的治疗中,当其他优选药物不可用时,头孢德罗可作为有效治疗方案。在CRAB其他治疗方案失败、不耐受或不可用时,头孢德罗可以联合其他有活性的药物作为备选治疗方案。该药也可作为治疗不同部位DTR-PA感染的首选或替代方案之一。 临床上常用的新型四环素类药物包括替加环素、奥马环素和依拉环素,其作用机制与传统四环素类药物相似,主要通过被动扩散和主动转运两种方式穿过细菌细胞壁,与细菌核糖体30S亚基的A位结合,阻止氨酰基-转运RNA(transfer RNA, tRNA)与该位点结合,从而抑制肽链增长,影响细菌蛋白质合成,达到抑制细菌生长的作用,其抗菌活性不受碳青霉烯酶及类型的影响,即产碳青霉烯酶(如KPC、NDM、OXA-48样酶)和不产碳青霉烯酶的耐药菌都可能对其敏感。2023年中国碳青霉烯类耐药的革兰阴性菌指南推荐依拉环素可作为CRE和CRAB的治疗选择之一,在应对耐药菌感染方面发挥着重要作用。替加环素、奥马环素和依拉环素与细菌核糖体30S亚基的亲和力分别是四环素的5倍、2倍和14倍,依拉环素对CRAB的体外MIC值仅为替加环素的12.5%~50%。奥马环素更多应用于社区获得性感染,替加环素或依拉环素是治疗CRE感染的替代选择(不包括血流或尿路感染)。 多黏菌素是碱性多肽类药物,主要包括多黏菌素B和多黏菌素E。多黏菌素B常用剂型为硫酸多黏菌素B,多黏菌素E常用剂型为硫酸黏菌素和黏菌素E甲磺酸盐(colistimethate sodium,CMS)。抗菌作用机制主要包括破坏细菌的细胞外膜结构,使其通透性增加,诱导革兰阴性菌细胞内氧化应激反应,损伤细菌的DNA、脂质和蛋白质,最终导致细胞快速死亡。因此多黏菌素的抗菌活性不受碳青霉烯酶及其类型的影响。多黏菌素B和E的抗菌谱基本一致,属于窄谱抗菌药物。变形杆菌属、沙雷菌属、普罗威登斯菌属、摩根菌属和洋葱伯克霍尔德菌等细菌对多黏菌素天然耐药;非发酵菌如铜绿假单胞菌、鲍曼不动杆菌和嗜麦芽窄食单胞菌对其高度敏感;肠杆菌目细菌,包括CRE也对其有高度敏感性。需要注意的是,多黏菌素B和硫酸黏菌素可以直接发挥抗菌活性,主要推荐用于全身严重感染(如血流感染、肺炎、腹腔感染等)。而CMS本身无抗菌活性,需经肾脏代谢转化为有抗菌活性的多黏菌素E,故CMS更常用于尿路感染。多黏菌素存在异质性耐药,临床上应避免单独使用。 临床问题3:治疗产KPC的CRE感染,可选择的新型β-内酰胺酶抑制剂复方制剂有哪些? 推荐意见3:治疗产KPC的CRE感染,可选择的新型β-内酰胺酶抑制剂复方制剂包括头孢他啶-阿维巴坦、亚胺培南西司他丁-瑞来巴坦或美罗培南-韦博巴坦。(证据分级2a,推荐强度:强推荐) 证据总结:在治疗产KPC的CRE感染中,头孢他啶-阿维巴坦是首选药物之一,其体外敏感性高,临床疗效确切。一项基于美国31家医学中心于2018年至2022年对13 929株肠杆菌目分离株的体外监测报告显示,头孢他啶-阿维巴坦对产KPC的CRE治疗有效性超过95%。2024年CHINET细菌耐药监测结果显示,头孢他啶-阿维巴坦对中国临床分离的常见肠杆菌目细菌和铜绿假单胞菌的敏感率≥90%。 2017年的一项回顾性、多中心、配对队列研究比较了头孢他啶-阿维巴坦与其他抗菌方案在治疗CRKP血流感染中的疗效与安全性,研究纳入104例CRKP血流感染患者作为实验组,接受头孢他啶-阿维巴坦治疗,对照组是104例同期CRKP血流感染患者,接受"非头孢他啶-阿维巴坦"方案(主要为多黏菌素、碳青霉烯类、替加环素等)治疗,结果提示头孢他啶-阿维巴坦显著降低CRKP血流感染患者的30 d病死率,在倾向评分匹配后,头孢他啶-阿维巴坦仍是30 d病死率下降的独立保护因素(HR=0.56,95%CI:0.34~0.91)。2022年一项多中心、回顾性队列研究探讨了在CRE血流感染患者中快速分子检测(针对blaKPC基因)联合头孢他啶-阿维巴坦对治疗时机和病死率的影响,结果显示,在137例CRE血流感染组中,头孢他啶-阿维巴坦单药方案30 d病死率为10%,而对照组(多黏菌素单药方案)的30 d病死率为31%。多项临床研究均证明,与以往用于治疗产KPC的耐药菌感染的方案(如多黏菌素、氨基糖苷类、替加环素、碳青霉烯类等)相比,头孢他啶-阿维巴坦能带来更好的临床效果和安全性。值得注意的是,头孢他啶和阿维巴坦均具有亲水性、蛋白结合率低的特性,在兔脑膜炎模型中,头孢他啶与阿维巴坦的平均脑脊液穿透率分别为43%和38%,目前已有超过50篇使用头孢他啶-阿维巴坦成功治疗脑膜炎的病例报道,其中绝大多数病例未检测脑脊液药物浓度,共有17例成人和2例儿童患者取得了良好的治疗效果和耐受性,提示头孢他啶-阿维巴坦可用于治疗敏感的CRE或DTR-PA导致的脑膜炎。 目前已有多篇关于亚胺培南西司他丁-瑞来巴坦的多中心临床研究报道,一篇系统评价中纳入了8项研究(6项RCT、2项观察性研究),总计892例患者,感染病原体以铜绿假单胞菌和肠杆菌为主,结果显示亚胺培南西司他丁-瑞来巴坦与亚胺培南西司他丁+多黏菌素、亚胺培南西司他丁+安慰剂或哌拉西林-他唑巴坦相比,临床疗效差异无统计学意义,但亚胺培南西司他丁-瑞来巴坦耐受性更佳,肾毒性更低;然而该研究纳入的大部分临床研究没有针对耐药菌感染亚组分析的结果。RESTORE-IMI 1临床研究纳入了对亚胺培南耐药,但对多黏菌素及亚胺培南西司他丁-瑞来巴坦敏感的耐药菌感染患者,比较亚胺培南西司他丁-瑞来巴坦与亚胺培南西司他丁+多黏菌素治疗碳青霉烯类耐药菌感染的疗效与安全性,意向性治疗(intention-to-treat,ITT)分析共纳入31例患者,其中7例患者为CRE感染,亚胺培南西司他丁-瑞来巴坦组5例,多黏菌素+亚胺培南西司他丁组2例,两组治疗应答率为2/5(40%)与2/2(100%)。考虑到纳入CRE感染患者数量有限,仍需更大规模的针对CRE感染患者的临床研究来评价亚胺培南西司他丁-瑞来巴坦的临床应用价值。基于亚胺培南西司他丁-瑞来巴坦对产KPC的肠杆菌目细菌的体外活性,对于产KPC的肠杆菌目细菌感染,其仍是可选的有效药物之一。 有8项关于美罗培南-韦博巴坦的回顾性研究,纳入的患者中80%为CRE感染,主要为产KPC的CRE菌株感染者,此外也纳入了其他革兰阴性菌感染患者,这些研究显示总体治疗成功率为60%~75%,而30 d病死率为15%~30%。一项基于美国PINC AI数据库(2019年至2021年)的大规模回顾性研究中,纳入的CRE感染患者中455例使用美罗培南-韦博巴坦,2 320例使用头孢他啶-阿维巴坦,与头孢他啶-阿维巴坦组相比,美罗培南-韦博巴坦组患者具有更低的机械通气比例(35.0%比41.4%,P=0.010)和更低的住院病死率[17.0%(95%CI:13.6%~20.3%)比20.6%(95%CI:19.0%~22.2%),P=0.048]。另一项针对意大利19家医院的回顾性研究纳入了342例美罗培南-韦博巴坦治疗时间≥24 h的产KPC的CRKP感染成人患者,其中172例为血流感染,170例为非血流感染(包括107例下呼吸道感染、30例复杂性尿路感染和33例其他部位感染),62.3%的病例采用美罗培南-韦博巴坦单药治疗,结果显示总体30 d病死率为31.6%,感染发病48 h内启用治疗是独立保护因素,该研究证实了美罗培南-韦博巴坦对产KPC的CRKP重症感染的治疗价值,并凸显了早期用药的重要性。 体外数据显示,氨曲南-阿维巴坦和头孢吡肟-他尼硼巴坦对产KPC的CRE感染患者均有效,但目前发表的临床数据较少。为了将这2种药物保留用于治疗手段有限的产MBL耐药菌感染,建议将其作为替代药物使用。 临床问题4:治疗KPC亚型变异导致头孢他啶-阿维巴坦不敏感的CRE感染,可选择的新型β-内酰胺酶抑制剂复方制剂有哪些? 推荐意见4:治疗KPC亚型变异导致头孢他啶-阿维巴坦不敏感的CRE感染,根据药敏结果可选择的新型β-内酰胺酶抑制剂复方制剂包括亚胺培南西司他丁-瑞来巴坦、氨曲南-阿维巴坦或美罗培南-韦博巴坦。(证据分级4,推荐强度:强推荐) 证据总结:推荐对CRE感染患者进行动态的病原学随访,如在治疗过程中出现感染复发,尤其对于接受过头孢他啶-阿维巴坦治疗的患者,需要高度警惕KPC基因突变导致亚型变异,可选择更换新型β-内酰胺酶抑制剂复方制剂为亚胺培南西司他丁-瑞来巴坦、氨曲南-阿维巴坦及美罗培南-韦博巴坦等。此外,也有在KPC变异的CRKP感染病例中使用头孢他啶-阿维巴坦联合敏感的碳青霉烯类药物亚胺培南-西司他丁或美罗培南取得治疗成功的报道。 根据现有的体外研究,对于KPC亚型突变导致头孢他啶-阿维巴坦不敏感的CRKP,亚胺培南西司他丁-瑞来巴坦对于产KPC-8、KPC-14、KPC-31、KPC-33、KPC-39、KPC-44、KPC-50、KPC-53、KPC-57、KPC-86、KPC-134、KPC-145、KPC-155、KPC-185、KPC-216、KPC-219、KPC-220、KPC-221、KPC-222的菌株仍保留较高的敏感性;氨曲南-阿维巴坦对于产KPC-11、KPC-12、KPC-14、KPC-16、KPC-17、KPC-18、KPC-20、KPC-21、KPC-22、KPC-24、KPC-25、KPC-26、KPC-30、KPC-33、KPC-35、KPC-71、KPC-76、KPC-78、KPC-79、KPC-112、KPC-116的菌株具有较高的敏感性;美罗培南-韦博巴坦对于产KPC-31、KPC-33、KPC-35、KPC-44、KPC-50、KPC-57、KPC-71、KPC-76、KPC-78、KPC-79、KPC-86、KPC-112、KPC-116的菌株亦保持敏感。但疗效尚待更多的临床研究验证。 临床问题5:治疗产D类丝氨酸酶OXA-48的CRE感染,可选择的新型β-内酰胺酶抑制剂复方制剂有哪些? 推荐意见5:治疗产D类丝氨酸酶OXA-48的CRE感染可选择的新型β-内酰胺酶抑制剂复方制剂为头孢他啶-阿维巴坦。(证据分级3b,推荐强度:强推荐) 证据总结:超过95%的产OXA-48的肠杆菌分离株对头孢他啶-阿维巴坦敏感。2021年一项基于全球监测数据的体外研究系统评估了产OXA-48的碳青霉烯酶肠杆菌目细菌的流行趋势,并比较了头孢他啶-阿维巴坦与其他新型β-内酰胺酶抑制剂复方制剂(如美罗培南-韦博巴坦)的体外活性,结果提示头孢他啶-阿维巴坦、美罗培南-韦博巴坦对产OXA-48的CRE的敏感率分别为99%、46.7%,明确头孢他啶-阿维巴坦是目前对产OXA-48的CRE活性最高的新型β-内酰胺酶抑制剂复方制剂。美罗培南-韦博巴坦和亚胺培南西司他丁-瑞来巴坦对产OXA-48的CRE分离株作用有限,这是由于韦博巴坦和瑞来巴坦不能抑制OXA-48酶,所以即使在体外敏感,也不建议使用。 目前关于治疗产OXA-48菌株感染的临床研究数据有限,尚无比较头孢他啶-阿维巴坦与头孢德罗疗效的临床试验数据。一项观察性单臂研究纳入171例产OXA-48的肠杆菌感染患者,患者接受头孢他啶-阿维巴坦治疗,其30 d病死率为22%。2022年一项单中心、回顾性队列研究评估了头孢他啶-阿维巴坦治疗产OXA-48的CRKP血流感染的真实世界疗效及预后影响因素,共有57例头孢他啶-阿维巴坦治疗≥72 h的患者入组,结果提示头孢他啶-阿维巴坦单药即可在产OXA-48的CRKP血流感染患者中取得良好疗效(30 d病死率<20%),无需常规联合多黏菌素或替加环素,且尽早足量使用是改善预后的关键。在2项临床试验中,对10例接受头孢德罗治疗的产OXA-48的肠杆菌感染患者进行亚组分析,所有患者在第28天均存活,7例达到临床治愈。另外,头孢他啶-阿维巴坦联合氨曲南可用于治疗同时产OXA-48和NDM的CRE感染。罗马尼亚一项临床回顾性研究中7例同时产NDM和OXA-48的CRKP感染患者接受了头孢他啶-阿维巴坦联合氨曲南治疗,平均用药时间为9 d,所有患者均实现临床缓解,5例达到微生物学转阴。 此外,氨曲南-阿维巴坦和头孢吡肟-他尼硼巴坦对产OXA-48的CRE感染患者均有效,但目前已发表的临床数据较少,为了将这2种药物保留用于治疗手段有限的产MBL耐药菌感染,建议将其作为替代药物使用。 临床问题6:治疗产MBL的CRE感染,可选择的新型β-内酰胺酶抑制剂复方制剂有哪些? 推荐意见6:治疗产MBL的CRE感染,可选择的新型β-内酰胺酶抑制剂复方制剂包括氨曲南-阿维巴坦、头孢他啶-阿维巴坦联合氨曲南、头孢吡肟-他尼硼巴坦。(证据分级1b,推荐强度:强推荐) 证据总结:产MBL的肠杆菌目对氨曲南-阿维巴坦的体外敏感率在全球范围内为92.5%~100%。目前氨曲南-阿维巴坦已经公布了2项Ⅲ期临床研究结果。一项为随机对照研究(ASSEMBLE研究),使用氨曲南-阿维巴坦(复杂性腹腔感染需联合甲硝唑)治疗产MBL的革兰阴性菌引起的复杂性腹腔感染、医院获得性肺炎/呼吸机相关肺炎、复杂性尿路感染或血流感染,氨曲南-阿维巴坦组的整体临床治愈率高于接受最佳可及方案治疗的对照组患者(41.7%比0),其整体28 d全因病死率则低于对照组(8.3%比33.3%)。另一项为多中心、平行对照Ⅲ期临床研究(REVISIT研究),其在革兰阴性菌所致的复杂性腹腔感染、医院获得性肺炎或者呼吸机相关肺炎患者中评估对比了氨曲南-阿维巴坦±甲硝唑与美罗培南±多黏菌素的疗效、安全性和耐受性,结果显示对于产MBL的细菌感染患者,在微生物学可评估分析集中氨曲南-阿维巴坦±甲硝唑组的临床治愈率为50.0%(2/4),美罗培南±多黏菌素组为0(0/1)。综合药理作用机制、体外药敏数据及临床研究数据,氨曲南-阿维巴坦可作为产MBL的CRE患者的有效治疗方案。 氨曲南+头孢他啶-阿维巴坦也可用于产MBL的CRE感染的治疗,并建议同时输注。多篇回顾性临床队列研究显示,氨曲南+头孢他啶-阿维巴坦治疗产MBL细菌感染患者的28 d/30 d病死率显著低于对照组。一项前瞻性研究评估了产MBL的CRE所致血流感染的治疗效果,52例接受氨曲南+头孢他啶-阿维巴坦治疗的患者30 d病死率为19.2%,而50例接受其他抗菌药物治疗的患者病死率为44%。另一项研究纳入343例产MBL的肠杆菌目细菌感染患者,其中15株CRE产VIM酶,328株CRE产NDM酶,215例患者接受氨曲南+头孢他啶-阿维巴坦治疗,33例接受头孢德罗治疗,26例接受含多黏菌素方案治疗,3组未经调整的30 d病死率分别为22%、33%、50%。使用氨曲南+头孢他啶-阿维巴坦期间应密切监测患者肝功能,一项Ⅰ期研究中约40%的患者观察到肝酶升高的不良反应。目前,真实世界数据仍局限于观察性研究,剂量优化、耐药监测及肝肾安全性需要更大规模的RCT验证。 头孢吡肟-他尼硼巴坦对产NDM、VIM的菌株具有抗菌活性,但对产IMP的菌株无抗菌活性。一项评价头孢吡肟-他尼硼巴坦治疗复杂性尿路感染疗效的Ⅲ期RCT临床研究中,有2例患者感染的病原体分别为产NDM-1的CRKP和产NDM-1的黏质沙雷菌,在疗效判定访视时均获得了临床应答和微生物学应答。由于临床数据有限,且体外敏感率数据低于氨曲南-阿维巴坦,头孢吡肟-他尼硼巴坦用于治疗产MBL的CRE仍需更多的临床数据支持。 产MBL的耐药菌治疗方案有限,除新型β-内酰胺酶抑制剂复方制剂以外,不同地区产MBL的CRE对头孢德罗的体外敏感率具有显著差异(59.4%~97.7%)。两项Ⅲ期RCT临床研究(CREDIBLE-CR研究和APEKS-NP研究)的结果显示,头孢德罗对产MBL的革兰阴性菌感染显示出良好疗效,临床治愈率为70.8%(17/24),微生物清除率为58.3%(14/24),28 d全因病死率为12.5%(3/24),均优于最佳可用疗法及高剂量美罗培南对照组[分别为40.0%(4/10)、30.0%(3/10)和50.0%(5/10)]。 临床问题7:治疗CRAB感染首选何种治疗方案? 推荐意见7:首选含舒巴坦制剂的联合治疗方案治疗CRAB感染,包括舒巴坦-度洛巴坦联合碳青霉烯类药物(可选亚胺培南-西司他丁、美罗培南),大剂量舒巴坦(每日9 g舒巴坦,可选头孢哌酮-舒巴坦、氨苄西林-舒巴坦及单剂型舒巴坦)联合至少1种对鲍曼不动杆菌具有抗菌活性的药物,可作为联合用药的药物包括多黏菌素、新型四环素类抗菌药物(米诺环素、替加环素、依拉环素)、铁载体头孢菌素头孢德罗等。(证据分级1b,推荐强度:强推荐) 证据总结:一项大型体外研究收集了2016年至2021年来自亚太地区、欧洲、拉丁美洲、中东及北美共33个国家的5 032株鲍曼-醋酸钙不动杆菌复合体( Acinetobacter baumannii- calcoaceticus complex,ABC)临床分离株,体外药敏结果显示,联合度洛巴坦后,舒巴坦对ABC菌株的MIC50从8 μg/mL降低至1 μg/mL,MIC90从64 μg/mL降低至2 μg/mL;2 488株CRAB菌株中有96.9%在体外表现出对舒巴坦-度洛巴坦敏感。2023年一项全球多中心、随机对照Ⅲ期临床试验(ATTACK研究)评估比较了舒巴坦-度洛巴坦与多黏菌素在治疗CRAB感染等严重感染中的疗效与安全性,所有受试者均使用了亚胺培南-西司他丁联合用药,疗程7~14 d,研究结果表明舒巴坦-度洛巴坦组28 d全因病死率非劣效于多黏菌素组(19.0%比32.3%),临床治愈率(62%比40%)和微生物学清除率(68%比42%)均显著高于多黏菌素组,肾毒性发生率则显著低于多黏菌素组(13%比38%)。体外研究显示,舒巴坦-度洛巴坦与亚胺培南-西司他丁联合能使对CRAB的MIC50较舒巴坦-度洛巴坦单药降低1个倍比稀释度。二者的协同机制可能是对PBP的互补结合,亚胺培南快速结合PBP2,而舒巴坦优先结合PBP3和PBP1,度洛巴坦能够同时保护舒巴坦和亚胺培南避免被碳青霉烯酶水解;时间-杀菌曲线也显示舒巴坦-度洛巴坦与亚胺培南在体外表现出协同杀菌作用。目前尚缺乏临床研究对比舒巴坦-度洛巴坦单药与联合碳青霉烯类药物之间对于CRAB感染的疗效,基于现有的体外数据,建议舒巴坦-度洛巴坦联合碳青霉烯类药物(可选亚胺培南-西司他丁、美罗培南)作为CRAB感染的首选治疗方案。此外,在使用舒巴坦-度洛巴坦联合治疗医院获得性肺炎/呼吸机相关肺炎、血流感染、中枢神经系统感染的数篇病例报告中,含舒巴坦-度洛巴坦的其他联合治疗方案(联合用药包括美罗培南、替加环素、头孢德罗等)也表现出了起效快、病原清除快、治疗效果佳的优势。舒巴坦-度洛巴坦治疗脑膜炎的动物实验数据不足,氨苄西林-舒巴坦的研究数据表明舒巴坦的脑脊液穿透率为11%~34%,而度洛巴坦与阿维巴坦具有结构上的高度相似性,可以合理推定其在脑脊液中的穿透性。目前已有2例使用含舒巴坦-度洛巴坦的联合方案成功治疗CRAB脑膜炎的病例报道,其中1例成人CRAB脑膜炎患者在使用舒巴坦-度洛巴坦的第7天(脑脊液指标已恢复正常后)检测了血浆和脑脊液样本中的药物浓度,结果表明舒巴坦的脑脊液穿透率约为10%~37%,度洛巴坦约为9%~26%。这些数据显示出舒巴坦-度洛巴坦在治疗CRAB中枢神经系统感染中的潜力。 当舒巴坦-度洛巴坦不可及或不适合使用时,大剂量舒巴坦(每日9 g舒巴坦,可选头孢哌酮-舒巴坦、氨苄西林-舒巴坦及单剂型舒巴坦)联合至少1种对鲍曼不动杆菌具有抗菌活性的药物仍可作为CRAB治疗的首选方案之一,可作为联合用药的药物包括多黏菌素、新型四环素类药物(米诺环素、替加环素、依拉环素)、铁载体头孢菌素头孢德罗等。2021年的一项荟萃分析纳入了18项研究,总计1 835例患者,结果发现,含氨苄西林-舒巴坦(舒巴坦每日剂量至少6 g)的联合治疗方案对于降低重症CRAB感染患者的病死率最有效。2017年的一项荟萃分析纳入了23项研究共2 118例CRAB感染患者,在对舒巴坦为基础、多黏菌素为基础和四环素为基础的治疗方案进行比较后发现,舒巴坦对于减少病死率具有最佳效果。在多项含有舒巴坦方案的CRAB感染临床研究中,与以多黏菌素为基础的治疗组比较,以舒巴坦为基础的治疗组都显示出较对照组更低的病死率,尽管并非都具有统计学差异,但提示含舒巴坦的治疗方案对于CRAB的治疗具有益处。综合考虑体外、动物实验和临床数据,在无法使用舒巴坦-度洛巴坦的情况下,高剂量舒巴坦与第2种药物联合使用,是治疗CRAB感染的有效替代方案。根据现有的PK/PD数据,推荐舒巴坦每日总剂量为9 g。 CRAB具有多种耐药机制,在一项全球多中心的调查结果中,91%的CRAB菌株携带碳青霉烯酶基因,其中blaOXA-23占88%,然而极少比例的CRAB因产MBL给临床治疗带来了更大的困难。一项针对全球47个国家313株CRAB菌株的分子流行病学研究显示,MBL基因的检出率为2.2%(7株),大部分产MBL的CRAB菌株分离自亚洲和非洲。由于度洛巴坦不能抑制MBL,金属酶也是CRAB对舒巴坦-度洛巴坦产生耐药的主要机制之一。对于这类CRAB感染,以头孢德罗、新型四环素类药物(米诺环素/替加环素/依拉环素)、多黏菌素等药物为基础的联合治疗是可选择的治疗方案。 临床问题8:治疗DTR-PA感染可选择的新型β-内酰胺酶抑制剂复方制剂有哪些? 推荐意见8:对于DTR-PA感染的治疗,可选择的新型β-内酰胺酶抑制剂复方制剂包括头孢洛生-他唑巴坦、头孢他啶-阿维巴坦、亚胺培南西司他丁-瑞来巴坦;治疗产MBL的DTR-PA感染可选择头孢德罗。(证据分级3b,推荐强度:强推荐) 证据总结:铜绿假单胞菌的耐药机制复杂,常是由包括碳青霉烯酶在内的多种耐药机制共同作用的结果,例如外膜孔蛋白(特别是OprD)的缺失或突变、外排泵(如MexAB-OprM)的上调、AmpC酶的过表达,以及生物膜形成等。一项前瞻性队列研究(POP研究)对来自10个国家的972株CRPA分离株进行分析,其中22%(211/972)检测到碳青霉烯酶基因;在ERACE-PA全球监测计划中,对807株CRPA菌株进行了检测,发现33%产碳青霉烯酶。头孢洛生-他唑巴坦、头孢他啶-阿维巴坦、亚胺培南西司他丁-瑞来巴坦是对耐药铜绿假单胞菌临床分离株具有较强活性的新型β-内酰胺酶抑制剂复方制剂。美国监测数据汇总显示,这3种药物对碳青霉烯类不敏感铜绿假单胞菌的敏感率分别约为90%、85%、86%。这些新型β-内酰胺酶抑制剂复方制剂对于DTR-PA的敏感性差异主要源于β-内酰胺酶不同的流行情况,例如,头孢洛生-他唑巴坦对产KPC的铜绿假单胞菌无活性,因此在KPC流行的地区(如拉丁美洲、中国)其敏感率会下降。头孢他啶-阿维巴坦对产GES的铜绿假单胞菌具有较高的活性,但亚胺培南西司他丁-瑞来巴坦对GES效果较差,因此在GES流行地区(如西班牙),头孢他啶-阿维巴坦的敏感率可能高于其他新型β-内酰胺酶抑制剂复方制剂。由于头孢洛生-他唑巴坦、头孢他啶-阿维巴坦和亚胺培南西司他丁-瑞来巴坦均对产MBL(如NDM、VIM)的铜绿假单胞菌无效,在MBL流行的地区(如拉丁美洲、中东),这些药物的敏感率均会下降。若耐药铜绿假单胞菌分离株对头孢洛生-他唑巴坦、头孢他啶-阿维巴坦和亚胺培南西司他丁-瑞来巴坦均耐药,需考虑产MBL的可能。因此,针对耐药铜绿假单胞菌感染,应获取这3种新型β-内酰胺酶抑制剂复方制剂的药敏结果以指导治疗决策。 此外,新型铁载体类头孢菌素头孢德罗对碳青霉烯类不敏感铜绿假单胞菌的敏感率可高达90%以上,且对产MBL的铜绿假单胞菌仍有效。关于使用头孢德罗治疗产MBL铜绿假单胞菌感染的临床数据有限,在2项Ⅲ期随机对照研究中,病原体为铜绿假单胞菌的病例共11例(CREDIBLE-CR研究中7例,APEKS-NP研究中4例),其中头孢德罗组6例,对照组5例。2项研究未单独分析产MBL的铜绿假单胞菌感染病例的结局,但在以铜绿假单胞菌为主的非发酵菌亚组,CREDIBLE-CR与APEKS-NP两项研究中头孢德罗组疗效判定访视时的治愈率均为66.7%。 尽管有限的体外数据和个案报道提示头孢他啶-阿维巴坦联合氨曲南对产MBL的铜绿假单胞菌感染可能具有临床疗效,但在该联合方案治疗产MBL的革兰阴性菌感染的系统综述中发现,其仅对6%的产MBL的铜绿假单胞菌具有活性。 临床问题9:碳青霉烯类耐药的革兰阴性菌感染使用新型β-内酰胺酶抑制剂复方制剂的治疗流程是怎样的? 推荐意见9:碳青霉烯类耐药的革兰阴性菌感染使用新型β-内酰胺酶抑制剂复方制剂的治疗流程详见图1。(证据分级5,推荐强度:强推荐)  图1 碳青霉烯类耐药的革兰阴性菌感染使用新型β-内酰胺酶抑制剂复方制剂的治疗流程 注:ICU为重症监护病房;药敏为药物敏感试验;CRE为碳青霉烯类耐药的肠杆菌目细菌;MBL为金属β-内酰胺酶;CRAB为碳青霉烯类耐药的鲍曼不动杆菌;DTR-PA为难治性耐药的铜绿假单胞菌;KPC为肺炎克雷伯菌碳青霉烯酶;OXA为苯唑西林酶
七 耐药菌感控
耐药菌感控 不同国家和地区基于循证证据制订了多部耐药菌感染防控指南和共识,侧重点各有不同,但一致推荐的措施包括:手卫生、环境清洁消毒、接触隔离、针对性的主动监测,以及抗菌药物合理应用与管理,采取任何单一措施降低CRO感染/定植率的效果均非常有限。因此,推荐采取多模式干预措施,有望达到CRO感染最大的防控效果。 此外,人员规范化专业培训对这些措施的有效落实至关重要,推荐对所有医师、护理人员、医技人员、保洁人员和陪护人员进行培训和宣教。其中保洁和陪护等第三方管理人员缺乏医学和公共卫生教育背景,是CRO感染防控的重点管理对象,应根据其文化水平分别进行强化培训和宣教。
八 总 结
总 结 CRO感染持续构成全球健康威胁,针对CRE、CRAB、DTR-PA等关键耐药菌应加强监测和预警。在常规耐药监测基础上,应积极开展耐药基因分子检测,有助于掌握耐药机制与传播趋势,补充临床急需的新型抗菌药物药敏试验结果,并建议将碳青霉烯酶检测纳入实验室工作流程。本共识系统梳理了新型β-内酰胺酶抑制剂复方制剂,基于现有最佳证据,共形成9条核心推荐意见,为临床医师提供了从经验性治疗到靶向性治疗的全流程决策支持。核心在于强调"精准狙击"的理念:经验性用药需综合考量本地耐药菌流行病学、感染部位及患者个体特征;一旦获得碳青霉烯酶分型结果,应优先选用对该酶型活性最强、耐药屏障最高的药物,以最大限度地提升治疗成功率并遏制耐药菌的进一步蔓延。这些推荐意见的落地实施,将有望显著改善我国CRO感染的治疗困境。 需要说明的是,本共识聚焦于新型β-内酰胺酶抑制剂复方制剂,对于其他作用机制的抗感染措施(如多黏菌素、新型四环素、铁载体头孢菌素、噬菌体等)在CRO感染中的应用未予充分涵盖及具体展开。CRO感染的治疗决策不仅依赖于表型药敏和酶型鉴定,患者的基础疾病、免疫状态、药物PK/PD特性及细菌接种效应、其他耐药机制(如膜孔蛋白缺失或修饰、药物外排泵过度表达、PBP靶位改变及生物膜形成)等多重因素也要纳入考量。 同时,亟须构建以AMR防控为核心,整合行政管理、医疗、社区、制药、环境等多领域的资源,联动志愿者与公众力量的"大感控"体系,打造跨行业、多学科协同的防治格局;通过教育与倡导,提升全社会对抗微生物药物耐药的科学认知,从源头减少药物不合理使用;深度融合临床、药学、微生物、护理、感染控制等多学科专家智慧,推动AMR防控的科学化与精细化,全面遏制耐药菌的产生与传播。 执笔专家: 李宁(复旦大学附属华山医院)、王璇(复旦大学附属华山医院)、刘其会(复旦大学附属华山医院)、刘家伟(武汉大学医院管理研究所)、吴丁(武汉大学中南医院)、刘宏卯(浙江大学医学院附属邵逸夫医院)、叶青(武汉大学人民医院) 专家组组长: 张文宏(复旦大学附属华山医院)、林丽开(武汉大学医院管理研究所)、王福生(中国人民解放军总医院第五医学中心) 共识制订专家组(按姓名拼音排序): 艾静文(复旦大学附属华山医院)、曹海芳(青海省第四人民医院)、陈恩强(四川大学华西医院)、陈小华(上海交通大学医学院附属第六人民医院)、邓存良(西南医科大学附属医院)、丁洋(中国医科大学附属盛京医院)、范玉琛(山东大学齐鲁医院)、冯佳佳(武汉大学医院管理研究所)、冯四洲[中国医学科学院血液病医院(中国医学科学院血液学研究所)]、高晓红(延安大学附属医院)、郜玉峰(安徽医科大学第一附属医院)、顾兵(广东省人民医院)、何宏亮[中国科学技术大学附属第一医院(安徽省立医院)]、何秋毅(中山大学附属第一医院)、何艳(中南大学湘雅二医院)、何英利(西安交通大学第一附属医院)、黄祖雄(福建医科大学孟超肝胆医院)、蒋忠胜(柳州市人民医院)、金嘉琳(复旦大学附属华山医院)、康文(空军军医大学唐都医院)、李婕(南京大学医学院附属鼓楼医院)、李俊峰(兰州大学第一医院)、李凌华(广州医科大学附属市八医院)、李一荣(武汉大学中南医院)、屈莉红(上海市东方医院)、任志刚(郑州大学第一附属医院)、申川(河北医科大学第三医院)、沈银忠(上海市公共卫生临床中心)、宋宁(河北医科大学第二医院)、田宏攀(武汉大学中南医院)、王芙蓉(内蒙古自治区第四医院)、王森(复旦大学附属华山医院)、王亚东(河北医科大学第三医院)、王瑶(中国医学科学院北京协和医院)、吴涛(海南省人民医院/海南省公共卫生临床中心)、谢剑锋(东南大学附属中大医院)、谢松松(石河子大学第一附属医院)、徐哲(中国人民解放军总医院第五医学中心)、许洁(上海交通大学医学院附属第九人民医院)、颜学兵(徐州医科大学附属医院)、杨道坤(河南医药大学第一附属医院)、杨兴祥(四川省医学科学院·四川省人民医院)、杨文杰(天津市第一中心医院)、袁静(深圳第三人民医院)、曾玫(复旦大学附属儿科医院)、张瑜(武汉大学医院管理研究所)、朱峰(江南大学附属无锡五院) 共识评审专家组(按姓名拼音排序): 卞晓岚(上海交通大学医学院附属瑞金医院)、胡必杰(复旦大学附属中山医院)、李家斌(安徽医科大学第一附属医院)、宓余强(天津市第四中心医院)、王晖(上海交通大学医学院附属瑞金医院)、邬小萍(南昌大学第一附属医院)、吴安华(中南大学湘雅医院)、杨启文(中国医学科学院北京协和医院)、张凯宇(吉林大学第一医院)、赵彩彦(河北医科大学第三医院)、赵鸿(北京大学第一医院) 点击左下角“阅读原文”,获取更多文章信息 来源:中华传染病杂志 编辑:沈祯敏 初审:沈锡宾 终审:干 岭 
推荐意见与 GRADE 证据分级
| # | 推荐意见 | 证据等级 | 出处 |
|---|---|---|---|
| 1 | 碳青霉烯类耐药革兰阴性菌的治疗推荐积极进行表型药敏和酶型检测,并动态随访。(证据分级5,推荐强度:强推荐)证据总结:细菌产生β-内酰胺酶是最常见且最重要的耐药机制,在革兰阴性菌中尤为突出。β-内酰胺酶的检测不仅是诊断耐药菌感染、揭示其耐药机制的基石,更是指导个体化精准治疗、避免无效用药、改善患者临床结局的核心依据。由于不同类型的β-内酰胺酶具有不同的底物谱,所以精确鉴定酶的类别能够预测细菌对特定β-内酰胺类抗菌药物的耐药情况。头孢他啶-阿维巴坦对产ESBL、AmpC、KPC和OXA-48型酶的肠杆菌目细菌表现出很高的抗菌活性,但对产MBL的革兰阴性菌无抗菌活性。亚胺培南西司他丁-瑞来巴坦、美罗培南-韦博巴坦对产ESBL、AmpC、KPC的肠杆菌目细菌,以及产KPC和AmpC酶过表达的铜绿假单胞菌均表现出强大的活性。有体外研究发现,对于某些KPC亚型突变导致头孢他啶-阿维巴坦不敏感的CRKP中,亚胺培南西司他丁-瑞来巴坦仍保留有较高的敏感性,但其对产D类OXA-48样碳青霉烯酶及MBL(如NDM、VIM、IMP等)的菌株无抗菌活性。头孢洛生-他唑巴坦对铜绿假单胞菌具有很强的抗菌活性,对肠杆菌目细菌也具有广谱抗菌活性,尤其对于产ESBL的菌株同样有效,但对产AmpC酶的肠杆菌目细菌活性有限,对产碳青霉烯酶的菌株无效。氨曲南-阿维巴坦则对产NDM、VIM和IMP等MBL和(或)表达KPC、ESBL、AmpC或OXA-48的肠杆菌目细菌(如大肠埃希菌、肺炎克雷伯菌)具有强大的活性,及时弥补了临床上对于产金属酶的耐药菌感染的治疗难点,同时也有体外研究表明氨曲南-阿维巴坦对于某些KPC亚型突变导致头孢他啶-阿维巴坦不敏感的CRKP也具有较高的敏感性。头孢吡肟-他尼硼巴坦是一种新型的可以覆盖部分MBL(不包括IMP)的β-内酰胺酶抑制剂复方制剂,对CRE和CRPA具有体外高活性,包括产NDM、VIM、KPC、AmpC、OXA-48和ESBL的菌株。舒巴坦-度洛巴坦则针对CRAB,对于产D类OXA家族β-内酰胺酶(包括OXA-23、OXA-24/40、OXA-51、OXA-58等)的鲍曼不动杆菌有强效的抗菌活性,D类酶正是鲍曼不动杆菌对β-内酰胺类药物产生耐药的最常见原因。但产MBL的CRAB通常对舒巴坦-度洛巴坦耐药。 | 1 | |
| 2 | 当碳青霉烯酶检测不可及,治疗碳青霉烯类耐药革兰阴性菌感染时,经验性治疗应基于当地的流行病学、患者的感染部位、严重程度和基础疾病综合评估。(证据分级5,推荐强度:强推荐)证据总结:产碳青霉烯酶是CRE最重要的耐药机制,KPC、NDM、VIM、IMP和OXA-48家族酶是全球流行的五大主要碳青霉烯酶,来自美国的流行病学数据显示产碳青霉烯酶菌株占所有CRE的35%~59%,其中86%~92%为KPC;来自中国的大规模数据则显示CRKP分离株中98.2%产碳青霉烯酶,其中KPC占89.4%。当碳青霉烯酶检测不可及,对于CRE的治疗可选择头孢他啶-阿维巴坦、亚胺培南西司他丁-瑞来巴坦及美罗培南-韦博巴坦等对KPC有强大的抑制能力的β-内酰胺酶抑制剂复方制剂。以下情况需考虑患者存在感染产MBL细菌的高风险:一是过去12个月内在MBL高流行地区有住院史,或既往的培养结果曾鉴定出产MBL的菌株;二是特殊人群中CRE携带MBL的比例高,如血液系统恶性肿瘤患者感染的CRKP菌株携带MBL的比例可达17%~24%;儿童CRKP感染患者MBL携带率远高于成人患者,可达60%~70%;中国碳青霉烯类耐药的大肠埃希菌、阴沟肠杆菌分离株中产NDM比例可高达75%,上述患者的经验性治疗可考虑覆盖产MBL的CRE,可选择的新型β-内酰胺酶抑制剂复方制剂包括氨曲南-阿维巴坦、头孢他啶-阿维巴坦联合氨曲南、头孢吡肟-他尼硼巴坦等。 | 1 | |
| 3 | 治疗产KPC的CRE感染,可选择的新型β-内酰胺酶抑制剂复方制剂包括头孢他啶-阿维巴坦、亚胺培南西司他丁-瑞来巴坦或美罗培南-韦博巴坦。(证据分级2a,推荐强度:强推荐)证据总结:在治疗产KPC的CRE感染中,头孢他啶-阿维巴坦是首选药物之一,其体外敏感性高,临床疗效确切。一项基于美国31家医学中心于2018年至2022年对13 929株肠杆菌目分离株的体外监测报告显示,头孢他啶-阿维巴坦对产KPC的CRE治疗有效性超过95%。2024年CHINET细菌耐药监测结果显示,头孢他啶-阿维巴坦对中国临床分离的常见肠杆菌目细菌和铜绿假单胞菌的敏感率≥90%。2017年的一项回顾性、多中心、配对队列研究比较了头孢他啶-阿维巴坦与其他抗菌方案在治疗CRKP血流感染中的疗效与安全性,研究纳入104例CRKP血流感染患者作为实验组,接受头孢他啶-阿维巴坦治疗,对照组是104例同期CRKP血流感染患者,接受"非头孢他啶-阿维巴坦"方案(主要为多黏菌素、碳青霉烯类、替加环素等)治疗,结果提示头孢他啶-阿维巴坦显著降低CRKP血流感染患者的30 d病死率,在倾向评分匹配后,头孢他啶-阿维巴坦仍是30 d病死率下降的独立保护因素(HR=0.56,95%CI:0.34~0.91)。2022年一项多中心、回顾性队列研究探讨了在CRE血流感染患者中快速分子检测(针对blaKPC基因)联合头孢他啶-阿维巴坦对治疗时机和病死率的影响,结果显示,在137例CRE血流感染组中,头孢他啶-阿维巴坦单药方案30 d病死率为10%,而对照组(多黏菌素单药方案)的30 d病死率为31%。多项临床研究均证明,与以往用于治疗产KPC的耐药菌感染的方案(如多黏菌素、氨基糖苷类、替加环素、碳青霉烯类等)相比,头孢他啶-阿维巴坦能带来更好的临床效果和安全性。值得注意的是,头孢他啶和阿维巴坦均具有亲水性、蛋白结合率低的特性,在兔脑膜炎模型中,头孢他啶与阿维巴坦的平均脑脊液穿透率分别为43%和38%,目前已有超过50篇使用头孢他啶-阿维巴坦成功治疗脑膜炎的病例报道,其中绝大多数病例未检测脑脊液药物浓度,共有17例成人和2例儿童患者取得了良好的治疗效果和耐受性,提示头孢他啶-阿维巴坦可用于治疗敏感的CRE或DTR-PA导致的脑膜炎。 | 1 | |
| 4 | 治疗KPC亚型变异导致头孢他啶-阿维巴坦不敏感的CRE感染,根据药敏结果可选择的新型β-内酰胺酶抑制剂复方制剂包括亚胺培南西司他丁-瑞来巴坦、氨曲南-阿维巴坦或美罗培南-韦博巴坦。(证据分级4,推荐强度:强推荐)证据总结:推荐对CRE感染患者进行动态的病原学随访,如在治疗过程中出现感染复发,尤其对于接受过头孢他啶-阿维巴坦治疗的患者,需要高度警惕KPC基因突变导致亚型变异,可选择更换新型β-内酰胺酶抑制剂复方制剂为亚胺培南西司他丁-瑞来巴坦、氨曲南-阿维巴坦及美罗培南-韦博巴坦等。此外,也有在KPC变异的CRKP感染病例中使用头孢他啶-阿维巴坦联合敏感的碳青霉烯类药物亚胺培南-西司他丁或美罗培南取得治疗成功的报道。根据现有的体外研究,对于KPC亚型突变导致头孢他啶-阿维巴坦不敏感的CRKP,亚胺培南西司他丁-瑞来巴坦对于产KPC-8、KPC-14、KPC-31、KPC-33、KPC-39、KPC-44、KPC-50、KPC-53、KPC-57、KPC-86、KPC-134、KPC-145、KPC-155、KPC-185、KPC-216、KPC-219、KPC-220、KPC-221、KPC-222的菌株仍保留较高的敏感性;氨曲南-阿维巴坦对于产KPC-11、KPC-12、KPC-14、KPC-16、KPC-17、KPC-18、KPC-20、KPC-21、KPC-22、KPC-24、KPC-25、KPC-26、KPC-30、KPC-33、KPC-35、KPC-71、KPC-76、KPC-78、KPC-79、KPC-112、KPC-116的菌株具有较高的敏感性;美罗培南-韦博巴坦对于产KPC-31、KPC-33、KPC-35、KPC-44、KPC-50、KPC-57、KPC-71、KPC-76、KPC-78、KPC-79、KPC-86、KPC-112、KPC-116的菌株亦保持敏感。但疗效尚待更多的临床研究验证。 | 1 | |
| 5 | 治疗产D类丝氨酸酶OXA-48的CRE感染可选择的新型β-内酰胺酶抑制剂复方制剂为头孢他啶-阿维巴坦。(证据分级3b,推荐强度:强推荐)证据总结:超过95%的产OXA-48的肠杆菌分离株对头孢他啶-阿维巴坦敏感。2021年一项基于全球监测数据的体外研究系统评估了产OXA-48的碳青霉烯酶肠杆菌目细菌的流行趋势,并比较了头孢他啶-阿维巴坦与其他新型β-内酰胺酶抑制剂复方制剂(如美罗培南-韦博巴坦)的体外活性,结果提示头孢他啶-阿维巴坦、美罗培南-韦博巴坦对产OXA-48的CRE的敏感率分别为99%、46.7%,明确头孢他啶-阿维巴坦是目前对产OXA-48的CRE活性最高的新型β-内酰胺酶抑制剂复方制剂。美罗培南-韦博巴坦和亚胺培南西司他丁-瑞来巴坦对产OXA-48的CRE分离株作用有限,这是由于韦博巴坦和瑞来巴坦不能抑制OXA-48酶,所以即使在体外敏感,也不建议使用。目前关于治疗产OXA-48菌株感染的临床研究数据有限,尚无比较头孢他啶-阿维巴坦与头孢德罗疗效的临床试验数据。一项观察性单臂研究纳入171例产OXA-48的肠杆菌感染患者,患者接受头孢他啶-阿维巴坦治疗,其30 d病死率为22%。2022年一项单中心、回顾性队列研究评估了头孢他啶-阿维巴坦治疗产OXA-48的CRKP血流感染的真实世界疗效及预后影响因素,共有57例头孢他啶-阿维巴坦治疗≥72 h的患者入组,结果提示头孢他啶-阿维巴坦单药即可在产OXA-48的CRKP血流感染患者中取得良好疗效(30 d病死率<20%),无需常规联合多黏菌素或替加环素,且尽早足量使用是改善预后的关键。在2项临床试验中,对10例接受头孢德罗治疗的产OXA-48的肠杆菌感染患者进行亚组分析,所有患者在第28天均存活,7例达到临床治愈。另外,头孢他啶-阿维巴坦联合氨曲南可用于治疗同时产OXA-48和NDM的CRE感染。罗马尼亚一项临床回顾性研究中7例同时产NDM和OXA-48的CRKP感染患者接受了头孢他啶-阿维巴坦联合氨曲南治疗,平均用药时间为9 d,所有患者均实现临床缓解,5例达到微生物学转阴。 | 1 | |
| 6 | 治疗产MBL的CRE感染,可选择的新型β-内酰胺酶抑制剂复方制剂包括氨曲南-阿维巴坦、头孢他啶-阿维巴坦联合氨曲南、头孢吡肟-他尼硼巴坦。(证据分级1b,推荐强度:强推荐)证据总结:产MBL的肠杆菌目对氨曲南-阿维巴坦的体外敏感率在全球范围内为92.5%~100%。目前氨曲南-阿维巴坦已经公布了2项Ⅲ期临床研究结果。一项为随机对照研究(ASSEMBLE研究),使用氨曲南-阿维巴坦(复杂性腹腔感染需联合甲硝唑)治疗产MBL的革兰阴性菌引起的复杂性腹腔感染、医院获得性肺炎/呼吸机相关肺炎、复杂性尿路感染或血流感染,氨曲南-阿维巴坦组的整体临床治愈率高于接受最佳可及方案治疗的对照组患者(41.7%比0),其整体28 d全因病死率则低于对照组(8.3%比33.3%)。另一项为多中心、平行对照Ⅲ期临床研究(REVISIT研究),其在革兰阴性菌所致的复杂性腹腔感染、医院获得性肺炎或者呼吸机相关肺炎患者中评估对比了氨曲南-阿维巴坦±甲硝唑与美罗培南±多黏菌素的疗效、安全性和耐受性,结果显示对于产MBL的细菌感染患者,在微生物学可评估分析集中氨曲南-阿维巴坦±甲硝唑组的临床治愈率为50.0%(2/4),美罗培南±多黏菌素组为0(0/1)。综合药理作用机制、体外药敏数据及临床研究数据,氨曲南-阿维巴坦可作为产MBL的CRE患者的有效治疗方案。 | 1 | |
| 7 | 首选含舒巴坦制剂的联合治疗方案治疗CRAB感染,包括舒巴坦-度洛巴坦联合碳青霉烯类药物(可选亚胺培南-西司他丁、美罗培南),大剂量舒巴坦(每日9 g舒巴坦,可选头孢哌酮-舒巴坦、氨苄西林-舒巴坦及单剂型舒巴坦)联合至少1种对鲍曼不动杆菌具有抗菌活性的药物,可作为联合用药的药物包括多黏菌素、新型四环素类抗菌药物(米诺环素、替加环素、依拉环素)、铁载体头孢菌素头孢德罗等。(证据分级1b,推荐强度:强推荐)证据总结:一项大型体外研究收集了2016年至2021年来自亚太地区、欧洲、拉丁美洲、中东及北美共33个国家的5 032株鲍曼-醋酸钙不动杆菌复合体( Acinetobacter baumannii- calcoaceticus complex,ABC)临床分离株,体外药敏结果显示,联合度洛巴坦后,舒巴坦对ABC菌株的MIC50从8 μg/mL降低至1 μg/mL,MIC90从64 μg/mL降低至2 μg/mL;2 488株CRAB菌株中有96.9%在体外表现出对舒巴坦-度洛巴坦敏感。2023年一项全球多中心、随机对照Ⅲ期临床试验(ATTACK研究)评估比较了舒巴坦-度洛巴坦与多黏菌素在治疗CRAB感染等严重感染中的疗效与安全性,所有受试者均使用了亚胺培南-西司他丁联合用药,疗程7~14 d,研究结果表明舒巴坦-度洛巴坦组28 d全因病死率非劣效于多黏菌素组(19.0%比32.3%),临床治愈率(62%比40%)和微生物学清除率(68%比42%)均显著高于多黏菌素组,肾毒性发生率则显著低于多黏菌素组(13%比38%)。体外研究显示,舒巴坦-度洛巴坦与亚胺培南-西司他丁联合能使对CRAB的MIC50较舒巴坦-度洛巴坦单药降低1个倍比稀释度。二者的协同机制可能是对PBP的互补结合,亚胺培南快速结合PBP2,而舒巴坦优先结合PBP3和PBP1,度洛巴坦能够同时保护舒巴坦和亚胺培南避免被碳青霉烯酶水解;时间-杀菌曲线也显示舒巴坦-度洛巴坦与亚胺培南在体外表现出协同杀菌作用。目前尚缺乏临床研究对比舒巴坦-度洛巴坦单药与联合碳青霉烯类药物之间对于CRAB感染的疗效,基于现有的体外数据,建议舒巴坦-度洛巴坦联合碳青霉烯类药物(可选亚胺培南-西司他丁、美罗培南)作为CRAB感染的首选治疗方案。此外,在使用舒巴坦-度洛巴坦联合治疗医院获得性肺炎/呼吸机相关肺炎、血流感染、中枢神经系统感染的数篇病例报告中,含舒巴坦-度洛巴坦的其他联合治疗方案(联合用药包括美罗培南、替加环素、头孢德罗等)也表现出了起效快、病原清除快、治疗效果佳的优势。舒巴坦-度洛巴坦治疗脑膜炎的动物实验数据不足,氨苄西林-舒巴坦的研究数据表明舒巴坦的脑脊液穿透率为11%~34%,而度洛巴坦与阿维巴坦具有结构上的高度相似性,可以合理推定其在脑脊液中的穿透性。目前已有2例使用含舒巴坦-度洛巴坦的联合方案成功治疗CRAB脑膜炎的病例报道,其中1例成人CRAB脑膜炎患者在使用舒巴坦-度洛巴坦的第7天(脑脊液指标已恢复正常后)检测了血浆和脑脊液样本中的药物浓度,结果表明舒巴坦的脑脊液穿透率约为10%~37%,度洛巴坦约为9%~26%。这些数据显示出舒巴坦-度洛巴坦在治疗CRAB中枢神经系统感染中的潜力。 | 1 | |
| 8 | 对于DTR-PA感染的治疗,可选择的新型β-内酰胺酶抑制剂复方制剂包括头孢洛生-他唑巴坦、头孢他啶-阿维巴坦、亚胺培南西司他丁-瑞来巴坦;治疗产MBL的DTR-PA感染可选择头孢德罗。(证据分级3b,推荐强度:强推荐)证据总结:铜绿假单胞菌的耐药机制复杂,常是由包括碳青霉烯酶在内的多种耐药机制共同作用的结果,例如外膜孔蛋白(特别是OprD)的缺失或突变、外排泵(如MexAB-OprM)的上调、AmpC酶的过表达,以及生物膜形成等。一项前瞻性队列研究(POP研究)对来自10个国家的972株CRPA分离株进行分析,其中22%(211/972)检测到碳青霉烯酶基因;在ERACE-PA全球监测计划中,对807株CRPA菌株进行了检测,发现33%产碳青霉烯酶。头孢洛生-他唑巴坦、头孢他啶-阿维巴坦、亚胺培南西司他丁-瑞来巴坦是对耐药铜绿假单胞菌临床分离株具有较强活性的新型β-内酰胺酶抑制剂复方制剂。美国监测数据汇总显示,这3种药物对碳青霉烯类不敏感铜绿假单胞菌的敏感率分别约为90%、85%、86%。这些新型β-内酰胺酶抑制剂复方制剂对于DTR-PA的敏感性差异主要源于β-内酰胺酶不同的流行情况,例如,头孢洛生-他唑巴坦对产KPC的铜绿假单胞菌无活性,因此在KPC流行的地区(如拉丁美洲、中国)其敏感率会下降。头孢他啶-阿维巴坦对产GES的铜绿假单胞菌具有较高的活性,但亚胺培南西司他丁-瑞来巴坦对GES效果较差,因此在GES流行地区(如西班牙),头孢他啶-阿维巴坦的敏感率可能高于其他新型β-内酰胺酶抑制剂复方制剂。由于头孢洛生-他唑巴坦、头孢他啶-阿维巴坦和亚胺培南西司他丁-瑞来巴坦均对产MBL(如NDM、VIM)的铜绿假单胞菌无效,在MBL流行的地区(如拉丁美洲、中东),这些药物的敏感率均会下降。若耐药铜绿假单胞菌分离株对头孢洛生-他唑巴坦、头孢他啶-阿维巴坦和亚胺培南西司他丁-瑞来巴坦均耐药,需考虑产MBL的可能。因此,针对耐药铜绿假单胞菌感染,应获取这3种新型β-内酰胺酶抑制剂复方制剂的药敏结果以指导治疗决策。 | 1 | |
| 9 | 碳青霉烯类耐药的革兰阴性菌感染使用新型β-内酰胺酶抑制剂复方制剂的治疗流程详见图1。(证据分级5,推荐强度:强推荐)图1 碳青霉烯类耐药的革兰阴性菌感染使用新型β-内酰胺酶抑制剂复方制剂的治疗流程注:ICU为重症监护病房;药敏为药物敏感试验;CRE为碳青霉烯类耐药的肠杆菌目细菌;MBL为金属β-内酰胺酶;CRAB为碳青霉烯类耐药的鲍曼不动杆菌;DTR-PA为难治性耐药的铜绿假单胞菌;KPC为肺炎克雷伯菌碳青霉烯酶;OXA为苯唑西林酶 | 1 |
相关指南
- 指南与共识|腹腔感染常见耐药菌诊治与防控中国专家共识(2026版) · 外科 2026
- 指南与共识|腹腔感染常见耐药菌诊治与防控中国专家共识(2026版) · 外科 2026
- 指南与共识|腹腔感染常见耐药菌诊治与防控中国专家共识(2026版) · 外科 2026
- 指南与共识|腹腔感染常见耐药菌诊治与防控中国专家共识(2026版) · 外科 2026
- 指南与共识|腹腔感染常见耐药菌诊治与防控中国专家共识(2026版) · 外科 2026
- 指南与共识|腹腔感染常见耐药菌诊治与防控中国专家共识(2026版) · 外科 2026
- 指南与共识|腹腔感染常见耐药菌诊治与防控中国专家共识(2026版) · 外科 2026
- 指南与共识|腹腔感染常见耐药菌诊治与防控中国专家共识(2026版) · 外科 2026
引用 / 出处
中华医学期刊网. 专家共识丨新型β-内酰胺酶抑制剂复方制剂临床应用专家共识[S/OL]. 2026.