指南与共识|胆道恶性肿瘤融合基因检测临床实践中国专家共识(2026版)
1 |BTC基因融合临床研究进展概要
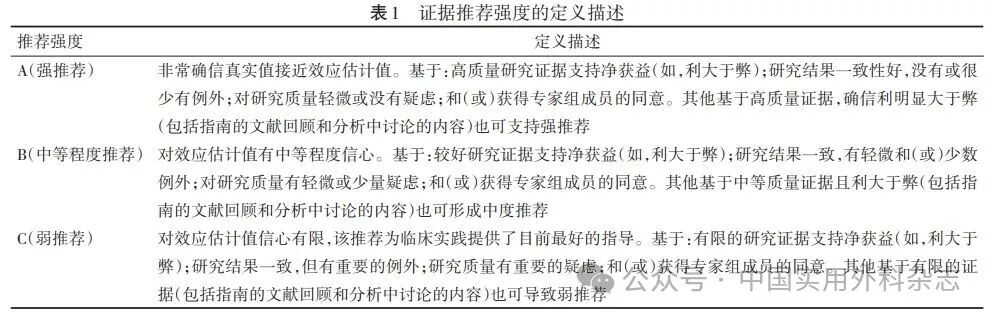
实体瘤中发生基因融合变异的比例为16.5%~20.0%,大多数基因融合均为随机事件,目前已发现约10 861个基因融合,涉及8934个染色体位点[10]。 BTC中融合基因总体发生率偏低,主要集中在FGFR2、NTRK1-3、RET等[11-12],且存在一定的组织特异性。FGFR2融合多见于iCCA[13],总体发生率为7%~22%[14-17]。FGFR2融合发生率在欧美iCCA人群中为10%~15%[18],在中国iCCA人群中为5.5%~11.9%[15,18-20]。 而在eCCA和GBC中,FGFR2融合检出率分别仅为2%和3%[14,20]。在iCCA中,FGFR2融合主要发生在小胆管亚型[21]。此外,FGFR2融合病人往往发病年龄更早[21-22],且女性比例高于男性[15]。疾病仅限于肝脏以及丙型肝炎病毒抗体(HCVAb)和(或)乙型肝炎表面抗原(HBsAg)阳性[21]也与FGFR2融合存在明显相关性。NTRK1-3融合则多见于iCCA和GBC[23],发生率分别为2%和1.7%。RET融合多发生于iCCA[24],发生率为1.8%。此外,ALK、ROS1、NRG1以及MET等基因融合在BTC中也有散在报道[24-27]。 FIGHT-202(ClinicalTrials.gov.NCT02924376)[28]、NAVIGATE(ClinicalTrials.gov.NCT02576431)[29]等临床试验证实,FGFR2和NTRK1-3融合等靶点的分子抑制剂可为晚期不可切除BTC病人带来明显生存获益[30]。其中,成纤维细胞生长因子受体(FGFR)抑制剂(包括佩米替尼、Futibatinib、Derazantinib、Erdafitinib)在iCCA二线治疗中表现出良好的抗肿瘤作用,总体客观缓解率(ORR)达20.7%~51.6%[28,31-32]。其他尚未被纳入指南的FGFR抑制剂也均显示出较好的疗效[33-34]。除佩米替尼、Futibatinib等药物外,Infigratinib、Derazantinib 和Erdafitinib也在FGFR2融合或重排阳性CCA中显示出一定抗肿瘤活性,其中Infigratinib研究报道ORR为18.8%~23.1%[35],Derazantinib 研究报道ORR 为20.7%~21.4%[31,36],Erdafitinib 在Ⅰ期研究及 RAGNAR 研究中亦显示出抗肿瘤活性[32,37]。除FGFR2融合外,其余融合靶点在BTC中较为罕见(发生率普遍<1%),目前缺少阳性病人临床病理特征相关报道。 FGFR靶向治疗BTC虽已展现出良好的抗肿瘤效果,但临床应用中不可避免会出现获得性耐药。这类疾病进展通常发生在治疗后6~12个月,其主要耐药机制与FGFR2激酶结构域发生获得性突变有关,从而干扰FGFR抑制剂与靶点结合[38]。目前BTC中与融合基因相关的耐药机制报道仍较少,更多耐药机制证据来源于其他癌种研究,例如在非小细胞肺癌(NSCLC)中,RET、ALK、MET等融合基因已被证实与靶向治疗耐药相关。未来需要进一步探索融合基因在BTC耐药中的作用。因此,对耐药病人进行基因检测时,建议同时覆盖更多融合基因类型与激酶结构域突变,以全面解析耐药机制,为后线治疗方案制定提供分子依据。 共识1:对晚期或不可切除BTC病人,建议可进行包含FGFR2、NTRK1/2/3、RET、ALK、ROS1、NRG1、MET 等靶点的融合基因检测方案,以筛选潜在可靶向治疗人群,其中对iCCA人群检测的临床价值尤为重要。(证据等级:2~3;推荐强度:A) 专家组意见:(1)FGFR2是BTC(尤其是iCCA)中基因融合发生率最高的靶点,相应FGFR抑制剂也获批用于CCA病人二线治疗。有研究结果表明,FGFR抑制剂在FGFR2融合阳性CCA病人的一线治疗中同样有效,在Derazantinib研究中纳入2例既往未经系统治疗的CCA病人,整体人群中位无进展生存期(median progression-free survival,mPFS)为5.7个月[31]。目前已有NCT03656536、NCT03773302、NCT04093362等多项ClinicalTrials注册临床试验正在探索FGFR抑制剂在FGFR2融合阳性CCA一线治疗中的作用。在FIGHT-101研究中,1例携带FGFR2::BICC1融合的GBC病人接受佩米替尼治疗后获得部分缓解[39],表明FGFR抑制剂对FGFR2融合阳性GBC可能有积极作用。因此,在对晚期CCA实施精准治疗时应重视FGFR2融合检测,特别是iCCA病人、女性或年轻病人以及HBsAg和(或)HCVAb阳性病人。(2)BTC融合基因的分布普遍呈“长尾效应”,表现为伴侣基因多样性,这一特征在FGFR2、NRG1及NTRK等融合基因中尤为显著。在iCCA的FGFR2融合事件中,已报道150余种不同伴侣基因,广泛分布于多条染色体上[40]。除FGFR2最常见的伴侣基因BICC1外,大部分伴侣基因多为个案报道[16]。NTRK融合阳性泛实体瘤队列中共鉴定出88种独特伴侣基因,其中65.9%为新发现类型[41]。伴侣基因不同可能改变融合蛋白的功能特性及肿瘤生物学行为,部分特定伴侣基因与临床治疗反应密切相关。在接受佩米替尼治疗的FGFR2融合CCA病人中,BICC1融合组较非BICC1融合组显示出更优的中位客观缓解率(42.9% vs.30.8%)[42]。此外,融合断点定位可显著影响靶向药物敏感度,不同融合亚型对治疗的响应存在差异[43]。因此,随着相关研究的深入,明确基因断点位置及伴侣基因类型将对临床治疗决策具有重要指导价值。
2 |BTC融合基因检测方案及检测结果解读
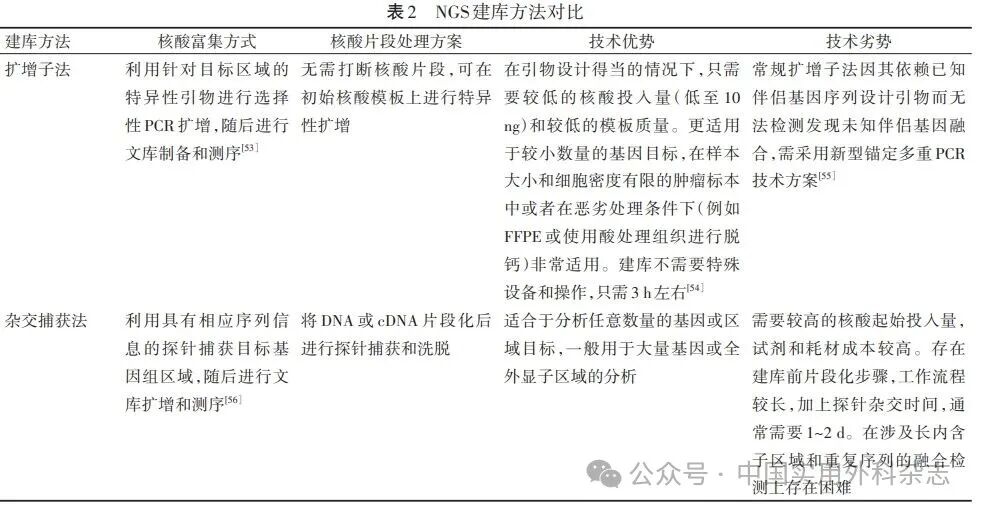
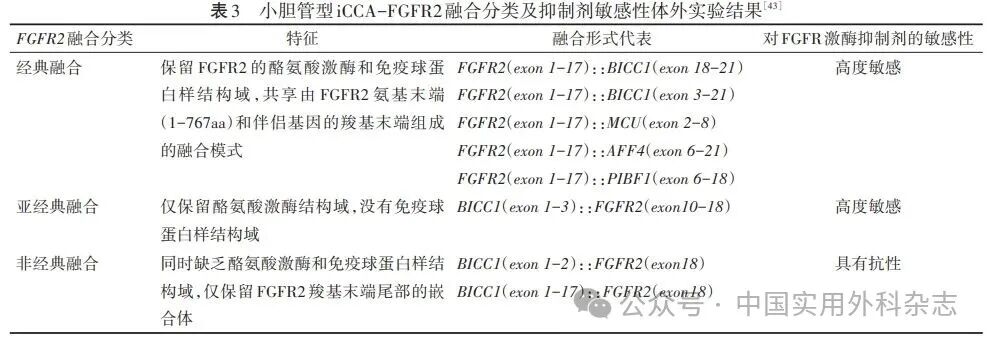
基因融合可在DNA、RNA或蛋白质等多个层面进行判定,临床实践中需要根据样本来源、样本质量、病人临床信息特征及BTC融合基因分子特征,制订规范化、个体化的检测方案。 2.1 融合基因检测技术 2.1.1 IHC 基因融合可能形成含独特或异常氨基酸序列的嵌合蛋白,IHC可通过检测嵌合蛋白过表达或细胞内蛋白质定位异常,直接提示融合变异的存在[44]。由于抗体特异性及融合事件复杂性,IHC结果易出现假阳性或假阴性,且无法提供融合伴侣及融合断点的确切核苷酸序列信息。 2.1.2 FISH 利用碱基互补配对原理,将荧光标记探针与目标基因DNA退火结合后,在荧光显微镜下观察靶基因杂交信号模式,从而判断是否发生融合事件,并确定基因重排的位置和模式[45]。FISH检测结果直观,但操作较复杂,一次仅能检测少数位点,且受杂交效率影响,可能出现假阴性结果。用于FISH检测的探针必须具有较高的敏感度和特异度,以识别特定基因或染色体上的特定片段;但FISH无法获悉融合伴侣及融合断点的确切核苷酸序列。由于检测结果判读较为主观,对制片和结果判读的技术要求均较高,诊断医生在进行FISH检测前须经过严格培训。 2.1.3 RT-PCR 通过特异性引物结合融合断点或断点周围区域,扩增相应互补DNA(cDNA)序列,以识别基因融合[46]。RT-PCR具有较高的敏感度和特异度,但检测通量较低,且只能检测已知经典融合类型,无法检测引物未覆盖或未知的融合类型。 2.1.4 NGS NGS是一种高通量基因测序技术,可在DNA或RNA层面判定融合事件[47]。相较于IHC、FISH等检测方法,NGS能同时筛查已知和未知融合类型,尤其适用于罕见或复杂融合(如涉及多个基因重排或内含子断点)的检测。其检测优势主要体现在检测通量高(同时检测数百万个核酸片段)、覆盖广(能够对整个基因组、转录组或靶向富集区域进行全面分析,可用于发现新型或罕见融合)[48],以及定位明确(提供融合断点具体核苷酸序列信息,有助于进一步细分评估不同融合亚型的分子生物学意义和临床意义)。NGS检测支持组织学、细胞学及体液等多种样本类型,依据检测层面的差异,又分为基于DNA测序的NGS(DNA-NGS)和基于RNA分析的NGS(RNA-based next generation sequencing,RNA-NGS)。其中,DNA-NGS适用于上述各类样本,而RNA-NGS主要适用于组织学标本,在体液等其他样本类型中的应用受限。目前,RNA测序方法是BTC融合变异检测的金标准。 NGS检测依赖于文库构建,主要方法包括杂交捕获法和扩增子法。杂交捕获法利用与目标区域互补的核酸探针进行富集,适用于高通量基因panel、全外显子组或转录组测序,但流程较长,对样本量和质量要求较高。扩增子法通过特异性引物对目标区域进行PCR扩增,建库流程快速,所需样本量较少,特别适用于甲醛固定-石蜡包埋(FFPE)等部分降解样本。但其检测范围通常限于已知靶点,对未知融合伴侣的检测存在局限。对低质量样本,扩增子法检出率优于杂交捕获法;其局限性在于罕见新型融合检测,如果融合的两个相关基因均未纳入RNA-NGS引物清单,则会出现漏检(表2)。  2.1.4.1 DNA-NGS 检测标本为肿瘤组织学和细胞学标本,还可通过循环肿瘤DNA(ctDNA)技术对血液、胆汁等体液进行检测。主要适用于检测IDH1突变、ERBB2(HER2)突变或扩增等BTC驱动基因变异。通过捕获基因编码区及常见融合出现的非编码区序列,DNA-NGS可发现融合基因,但其检测融合基因存在技术瓶颈,融合断点的广泛分布是主要技术挑战。肿瘤基因组变异中有意义的点突变或插入缺失(SNV/indel)通常分布在外显子或接近外显子-内含子交界处的区域,但外显子区域仅约占人类全基因组的1%,融合变异断点除少量分布在外显子上,绝大多数广泛分布于内含子和基因间隔区,内含子较长片段及重复序列均可能导致部分融合断点未能有效识别[49]。特别是FGFR2等断点多样、融合伴侣复杂的基因,只有针对这些区域设计完整的探针覆盖,才能全面检测基因融合事件[26]。更重要的是,DNA-NGS无法获悉融合DNA片段是否发生转录,因此,难以判断和解析非经典融合事件是否与驱动肿瘤发生相关。 2.1.4.2 RNA-NGS 检测标本为肿瘤组织学样本。可在仅含外显子的转录本层面鉴定基因融合,无需考虑内含子、可变剪接等因素对基因融合断点的影响,从而能以相对较小的靶区域和较少数量的探针实现融合事件全面检测[50]。与DNA水平相比,融合基因在RNA水平表现为两个基因的外显子结合,因此融合断点位置相对固定。这一特征有利于精准设计探针或引物,因此采用RNA-NGS检测融合基因较DNA-NGS更具优势。此外,RNA-NGS还可检测可变剪接事件和基因融合,明确融合基因读码框,并定量基因表达水平[51]。尤其在FISH结果不确定的情况下,建议进行RNA-NGS进一步验证。 2.1.4.3 DNA-NGS和RNA-NGS同步共检 指对同一份肿瘤样本分别进行DNA和RNA提取后,将RNA反转录为cDNA,再按一定比例将cDNA与DNA样本混合,加入特定引物形成混合体系,随后在同一体系中采用相同操作步骤进行核酸建库、测序和数据分析,即DNA+RNA同管建库后测序分析。通过上述方法实现的DNA-NGS和RNA-NGS共检,可同时进行目标基因SNV/indel和融合分析,不仅可以节约检测时间、无需增加检测样本量,也不会增加额外成本。但该方法需避免DNA和RNA在建库及测序过程中的相互干扰,并实现下机数据精准拆分,因此,对技术要求较高[52]。 2.1.4.4 DNA-NGS和RNA-NGS平行共检 指对同一份肿瘤样本提取核酸后(可联合提取或分别提取),将DNA和RNA置于两个独立反应体系中分别进行文库构建、测序和数据分析。相比同步共检,该方法相当于进行双倍建库流程,因此操作步骤相对繁琐,检测周期略长,且试剂成本和样本量需求通常高于单管建库法[52]。 2.1.5 全基因组测序 可在DNA层面检测所有已知和未知基因融合。这种方法需要大量起始DNA,且平均覆盖度较低,对标本质控要求较高,数据分析流程复杂,检测成本也较高,一般不用于常规临床检测,多用于科学研究。 2.1.6 全转录组测序 可在RNA水平检测所有已知和未知基因融合转录本。该方法对RNA质量和总量要求高,数据分析流程复杂,检测成本高。 2.2 BTC融合基因NGS高通量检测法规要求 依据中华人民共和国《医疗机构临床基因扩增检验实验室管理办法》(卫办医政发〔2010〕194号),在中华人民共和国境内对肿瘤人群实施NGS高通量基因测序的相关机构,需通过省级卫生行政部门相应技术审核和登记备案后,方可开展肿瘤高通量基因测序工作。肿瘤NGS高通量基因测序全流程管理涵盖每个环节,包括样本质控与质量保证、样本预处理、接头连接、预扩增、基因组靶区捕获、靶区纯化,以及扩增文库构建后的质控与定量,最终进行高通量基因测序。所有环节均应有标准操作规程和完整操作记录。中国合格评定国家认可委员会(CNAS)是中国医学检测实验室质量评定的国家级认可机构,对BTC病人进行NGS检测的机构应已通过CNAS/ISO15189/美国病理医师协会(CAP)检查和认可。所用试剂需获得国家药品监督管理局(NMPA)批准,或在“医疗机构自行研制使用体外诊断试剂”的试点机构,采用已获得药监局备案的NGS检测试剂。 开展BTC高通量NGS检测项目之前,应取得病人或其指定法定代理人的知情同意文件,并获悉肿瘤家族史等相关信息;应充分向其解释依据精准医学治疗理念进行肿瘤高通量基因测序的目的和适用范围;应向医师及病人或其指定法定代理人告知检测包含的驱动基因数量、信息、报告范围、技术分析的灵敏度和特异度等关键信息,并充分告知检测的局限性。知情同意文件相关内容中,应充分体现NGS高通量基因测序的法规依据、临床应用价值和局限性,并充分告知病人或其指定法定代理人检测结果是否用于BTC精准个体化治疗,以及须由临床医师参考并决策。 2.3 BTC融合基因检测方案及检测结果解读要点 2.3.1 FGFR2 位于人类10号染色体(10q26.13),编码蛋白包含3个免疫球蛋白样胞外结构域、跨膜区和胞内酪氨酸激酶结构域。FGFR2通过与FGF配体(如FGF1、FGF7、FGF10等)结合并二聚化,激活下游信号通路(如RAS/RAF/MEK/ERK、PI3K/AKT),调控细胞增殖、分化、迁移及血管生成。 FGFR2融合是BTC中最常见的融合变异,不同BTC人群的FGFR2 融合发生率存在差异,iCCA为5.5%~11.9%[15,18-20],eCCA约2%[14],GBC约3%[17]。ClinicalTrials.gov,NCT02924376研究显示,FGFR1/2/3抑制剂佩米替尼治疗BTC(iCCA占比为98%)的ORR达到35.5%[28]。目前佩米替尼已获NMPA批准,用于既往至少接受过一种系统性治疗,且经检测确认存在FGFR2融合或重排的晚期、转移性或不可手术切除的CCA成人病人的治疗。迄今FGFR2融合伴侣已报道>150种,其发生频率各不相同[40]。BICC1是FGFR2最常见的融合伴侣,约占所有FGFR2融合的27%,其他伴侣包括AHCYL1、TACC2、CCDC6、KIAA1217、WAC等[57]。上述伴侣基因多含有二聚化结构域,可诱导FGFR2受体二聚化,持续激活信号通路[40,57]。FGFR2基因融合断点主要集中于第17~18外显子及内含子区域,其断点位置和伴侣基因的功能结构域共同决定融合蛋白的致癌性及药物治疗响应性[43]。仇煜东等根据融合伴侣断裂位置,将小胆管型iCCA-FGFR2融合类型分为经典、亚经典、非经典3种亚型,并通过体外试验结果证实,FGFR激酶抑制剂只对保留酪氨酸激酶结构域的经典和亚经典融合蛋白具有抑制效应(表3)[43]。另有数据表明,约10%的FGFR2融合阳性病例无法明确融合伴侣,被报告为非伴侣重排[58]。目前尚未报道FGFR2融合与未识别伴侣基因重排在治疗缓解率方面存在明显差异[59]。  FGFR2融合变异检测存在较高技术难度,目前研究结果认为,这主要与其独特分子特征相关。首先,BTC的FGFR2融合伴侣具有很高异质性,仅20%~30%的融合伴侣是热点基因BICC1,其余融合伴侣呈明显“长尾效应”[58],部分融合伴侣发生率极低,仅有个案报道,融合伴侣强异质性导致FGFR2检测面临巨大挑战;其次,FGFR2融合存在复杂剪接机制,如在基因组水平11.1%的FGFR2重排事件下游断点为基因间区,通过转录后剪接形成与伴侣基因的融合;第三,FGFR2部分重排存在如17号内含子相关重排等较复杂形式,增加了检测及分析的技术难度。 检测方案:可采用FISH或NGS方案。FISH无法明确具体融合伴侣,更适用于融合事件快速筛查。用于检测FGFR2融合的FISH主要采用断裂探针法,即通过探针识别染色体断裂区域进行检测,但对距离较近(<3 Mb)的FGFR2重排存在检测局限性。有研究采用FISH、DNA-NGS和RNA-NGS分别检测226例iCCA样本的FGFR2融合。结果显示,FISH检测出的23例阳性样本中有3例是假阳性;DNA-NGS检测出的16例阳性样本中有1例是假阳性。RNA-NGS在特异性和敏感度方面表现最佳,分别达到99.5%和100%,是目前BTC中检测FGFR2融合变异准确性最高的方案[22]。因此,若进行DNA-NGS检测,对可疑融合需通过RNA-NGS或Nanopore长读长测序验证,确认其为功能性基因融合。由于FGFR2基因的融合伴侣具有高度异质性,其伴侣基因广泛分布于除chr13、chr15、chr16、chr21、chrY和chrX之外的所有染色体[58]。另一项研究结果则表明,FGFR2约35%的伴侣基因集中于chr10号染色体,其余65%则广泛分布于其他染色体(包括chr1、chr2、chr3、chr4、chr6、chr7、chr12、chr18和chr20)[22]。此外,部分FGFR2融合变异还表现出独特的复杂融合形式,如涉及17号内含子的复杂重排[60]。采用DNA-NGS与RNA-NGS联合检测,能够提高FGFR2融合识别准确率,尤其对罕见融合类型效果显著[16]。 2.3.2 NTRK NTRK基因家族包括NTRK1、NTRK2、NTRK3 3个基因,分别位于人类1号染色体长臂(1q23.1)、9号染色体长臂(9q21.33)和15号染色体长臂(15q25.3),对应编码TRKA、TRKB、TRKC蛋白。上述蛋白属于跨膜受体酪氨酸激酶家族,通过结合神经营养因子(如NGF、BDNF等)激活MAPK、PI3K-AKT、PKC等下游信号通路,调控神经细胞增殖、分化与存活。NTRK基因融合会导致其激酶结构域组成型激活,从而驱动肿瘤发生。此类融合常见于染色体易位,其中NTRK基因3'端激酶结构域与其他基因5'端含二聚化结构域连接,形成持续活化的致癌融合蛋白。BTC人群中NTRK融合发生率约0.1%[26]。根据ClinicalTrials.gov,NCT02097810、NCT02568267等研究结果[29][61],NMPA已批准恩曲替尼、拉罗替尼适用于经充分验证的检测方法诊断为NTRK融合基因且不包括已知获得性耐药突变,患有局部晚期、转移性疾病或手术切除可能导致严重并发症,以及无满意替代治疗或既往治疗失败的成人和儿童实体瘤病人。 NTRK基因融合伴侣基因具有高度异质性,且其在不同癌种中的分布与伴侣基因类型密切相关。在实体瘤中,常见NTRK1融合伴侣基因包括TPM3、LMNA、TPR、IRF2BP2和PEAR1;NTRK2常见融合伴侣基因有SQSTM1、PCSK5等;NTRK3则常与ETV6、STRN3和EML6融合[41]。NTRK1激酶结构域由第13~17外显子编码,激酶结构域上游内含子是基因融合事件的常见断点区域。NTRK2激酶结构域由第14~18外显子编码,其基因组结构复杂,内含子长度差异显著,融合断点分布广泛。NTRK3激酶结构域由第13~18外显子编码,最常见的ETV6::NTRK3融合多发生在第14或15内含子附近。不同NTRK融合伴侣可能影响TRK抑制剂疗效,但目前相关数据较为有限。一项发表于2024年的中枢神经系统肿瘤研究分析了12例携带不同NTRK融合的脑胶质瘤病人,发现尽管使用相同TRK抑制剂,疗效差异明显。研究者认为,这些差异可能与融合伴侣基因类型、融合断点位置及共存突变有关[62]。一项研究分析了近两万例实体瘤样本的NTRK融合结构特征与其致癌性和潜在疗效的关系。该研究指出,激酶结构域保留、融合方向及伴侣基因类型,是判断NTRK融合是否具有致癌性及其对TRK抑制剂敏感性的关键因素[63]。目前CCA 的NTRK融合研究报道主要来自泛瘤种研究及CCA小样本病例报道,已报道的伴侣基因有PLEKHA6、TP53、ARHGEF11、LMNA、TPM3及TRPM3等。小样本临床研究表明,接受拉罗替尼治疗的CCA 人群可获得疾病稳定的临床获益[29,61]。 检测方案:由于NTRK基因家族成员的基因组结构差异显著,且NTRK2内含子较长,导致检测难度较高,因此,引物设计或探针覆盖范围至关重要。IHC检测快速、成本低,采用泛原肌球蛋白受体激酶(Pan-TRK)抗体可同时检测NTRK1/2/3融合蛋白表达,适合初筛,但存在生理性表达导致的假阳性,且对NTRK3融合的灵敏度有限[23],需要进行分子检测验证。FISH灵敏度和特异度高,仅需少量组织样本,对肿瘤细胞比例要求较低,但无法确定融合伴侣基因,且对复杂易位(如染色体内重排)检测困难。RT-PCR灵敏度和特异度高,适用于已知融合伴侣的快速检测(如ETV6::NTRK3),但仅能检测预设计的融合类型,无法发现未设计和未知伴侣基因。DNA-NGS联合RNA-NGS可覆盖已知及未知融合伴侣基因,尤其适用于复杂或罕见融合类型,还能识别激酶结构域突变,为耐药病人提供后线治疗方案参考。ctDNA检测适用于组织样本不足或无法获取的病人,可动态监测肿瘤演变及耐药突变,但灵敏度较低,可能漏检低丰度融合。 2.3.3 RET RET基因位于人类10号染色体长臂(10q11.2),编码一种受体酪氨酸激酶,参与调控细胞增殖、分化和存活。当RET发生基因融合时,其激酶结构域与伴侣基因的卷曲螺旋结构域结合,形成异常嵌合蛋白,导致蛋白发生非配体依赖性二聚化,并持续激活RAS/MAPK和PI3K-AKT等信号通路,从而驱动肿瘤发生。BTC人群中RET融合发生率约0.1%[25]。NMPA已批准RET抑制剂塞普替尼、普拉替尼用于RET基因融合阳性非小细胞肺癌、甲状腺髓样癌、甲状腺癌等适应证,虽然上述两药物在BTC中尚未取得适应证,但相关研究发现BTC人群用药后可达到部分缓解(PR)、完全缓解(CR)、疾病稳定(SD)等临床治疗结局[64-65]。 RET伴侣基因具有高度异质性,其癌种分布与伴侣基因类型密切相关。例如,非小细胞肺癌中常见伴侣基因包括KIF5B、CCDC6和NCOA4[66];甲状腺乳头状癌中则发现CCDC6、NCOA4和CSTF3为伴侣基因[67];而在CCA中,已报道的伴侣基因有PRKG1、TRIM24和NCOA4[64]。目前普拉替尼和塞普替尼对RET融合CCA已观察到 PR、CR 或 SD 等疗效结果,但均来自泛瘤种研究中的小样本CCA数据或临床个案报道资料[64-65]。RET基因融合断点主要集中在第10或11号内含子。普拉替尼、塞普替尼等RET抑制剂对该位置融合疗效良好,且不同伴侣基因间治疗敏感度差异较小。RET融合不仅是原发驱动因素,也可作为其他靶向治疗的获得性耐药机制出现。例如,RUFY1-RET融合与ROS1融合的非小细胞肺癌病人对洛拉替尼的获得性耐药相关[68];TRIM33、GPRC6A、TLN1、KIAA1598、SPECC1、TRIM24和CCDC6等RET融合被报道可能是非小细胞肺癌表皮生长因子受体(EGFR)酪氨酸激酶抑制剂耐药机制[69]。也有研究发现,部分伴侣基因可能通过改变信号通路或与其他基因突变协同作用导致耐药[70]。 检测方案:FISH特异性高,但无法提供伴侣基因的具体信息;RT-PCR适用于已知伴侣基因的检测,但可能漏检罕见变异;NGS能够全面检测已知和未知伴侣基因,尤其适用于复杂融合类型。RNA-NGS在发现新型未知伴侣基因,以及辅助诊断和指导靶向治疗方面更具优势。DNA-NGS联合RNA-NGS检测可更精准地识别RET融合伴侣类型。 2.3.4 NRG1 是表皮生长因子(EGF)家族成员,位于人类8号染色体短臂(8p12)。其核心功能是通过与ERBB受体家族结合,激活PI3K/AKT、MAPK/ERK等下游信号通路,从而调控细胞增殖、分化、迁移和凋亡等生物学行为。NRG1基因发生框内融合时,其EGF样结构域被保留,而融合伴侣基因通常提供跨膜结构域,导致NRG1蛋白在细胞膜异常蓄积。该融合蛋白可持续激活HER3/HER2异源二聚体,引发下游信号通路过度活化,驱动细胞增殖失控和肿瘤发生。NRG1融合可能与肺腺癌不良预后相关,但目前尚无其对BTC生物学特性影响的相关报道。不同NRG1融合蛋白可激活不同的ERBB同源二聚体或异源二聚体,继而激活不同下游通路,可能导致病人对靶向治疗反应存在差异[71]。HER2/HER3双抗Zenocutuzumab可靶向ErbB2和ErbB3的胞外结构域,靶向臂阻断NRG1与ErbB3结合。在Zenocutuzumab治疗NRG1融合阳性的多实体瘤篮子试验中(ClinicalTrials.gov,NCT02912949研究),CCA人群的占比为6%,治疗后ORR达到20%[72]。美国食品药品监督管理局(FDA)已批准Zenocutuzumab用于晚期不可切除或转移性NRG1融合阳性CCA,目前该药物尚未在中国获批上市。 NRG1融合的典型结构是5′端伴侣基因与NRG1的3′端相融合[73]。NRG1融合伴侣基因包括CD74、SLC3A2、ATP1B1、CDH1、SETD4、TSHZ2、ADAM9、COX10-AS1、NOTCH2等,其中ATP1B1、NOTCH2在GBC病例中曾被报道[74]。Zenocutuzumab 在治疗NRG1融合阳性CCA研究中显示出一定的抗肿瘤活性,早期研究中ORR为20%(2/10)[72]。NRG1融合断点位置与伴侣基因存在相关性。例如,CD74、SLC3A2和ATP1B1的融合断点位于其第6~8外显子或第7内含子,而PARP8和NOTCH2的断点位于第1~5外显子。NRG1融合具备致癌性需满足以下条件:(1)NRG1位于融合基因的3′端。(2)融合基因包含位于第6~7外显子的EGF样结构域。(3)阅读框保持完整,或在非框内融合(out-of-frame)或仅包含伴侣基因5′非翻译区(UTR)的情况下存在内部转录起始位点(位于NRG1第2或第4外显子)[73]。NRG1与PCM1、STMN2和PMEPA1的融合由于缺乏致癌活性所需的EGF样结构域,其功能性和激活能力可能与致癌驱动因素无关[71]。 检测方案:DNA-NGS可能因断点覆盖不全而漏检。RNA-NGS检测可直接验证功能性融合转录本,是NRG1融合基因检测的金标准。 2.3.5 ALK 属于受体酪氨酸激酶家族,位于人类2号染色体短臂(2p23.1),编码跨膜蛋白,对神经系统发育和功能具有重要作用。ALK基因融合后可导致融合蛋白激酶结构域持续激活,引发PI3K/AKT、MAPK、STAT3等下游信号通路异常活化,促进细胞增殖和肿瘤形成。BTC人群的ALK融合发生率低,既往的相关研究仅在iCCA、GBC中有个案报道。目前阿来替尼、洛拉替尼、克唑替尼等ALK融合抑制剂尚未获FDA和NMPA批准用于BTC治疗。 ALK融合在非小细胞肺癌中已有广泛报道。其中,EML4是ALK最常见的伴侣基因,其他较少见的伴侣基因包括KIF5B、KLC1、TFG、HIP1、PTPN3、TPR、BIRC6和DCTN1等[75]。ALK基因常见融合断点位于第19内含子或第20外显子。不同ALK融合伴侣基因类型对靶向药物的敏感度存在差异。与经典EML4::ALK融合相比,非经典融合(如ACVR1::ALK、ANXA4::ALK、C2orf91::ALK、CCDC85A::ALK、CLIP4::ALK等)或双融合(如EML4::ALK伴ALK::FOSL2)的非小细胞肺癌病人,一线接受克唑替尼治疗mPFS显著较短(8.4个月vs.12.0个月,P=0.004)[76]。ALK罕见融合对不同靶向药物的敏感度也存在差异。例如,HIP1::ALK融合可能导致克唑替尼治疗原发耐药,但对阿来替尼治疗有应答[77]。EML4::ALK经典融合的不同融合形式对靶向药物敏感度也存在差异。具体而言,对于接受第一代和第二代ALK靶向治疗的病人,EML4::ALK V3(E6;A20,EML4外显子6与ALK外显子20融合)变体的疗效明显低于V1(E13;A20)和V2(E20;A20)变体[78]。ALK融合在BTC中较为罕见,既往报道包括EML4::ALK[79]、STRN::ALK[80]、AMBRA1::ALK[24]。现有靶向ALK融合治疗BTC有效性的证据主要来自病例个案报道,阿来替尼、洛拉替尼或克唑替尼治疗个别ALK融合阳性iCCA/GBC病例曾获得PR或 SD[24,79-80]。 检测方案:FISH技术通过荧光探针标记ALK基因断点,观察信号分离情况,可检测已知和未知的ALK融合。然而,该方法操作复杂且耗时,并且无法明确伴侣基因。NGS检测覆盖ALK全序列及融合伴侣基因,RNA-NGS可提高基因融合检出率。 2.3.6 MET 位于人类7号染色体长臂(7q31),编码酪氨酸激酶受体MET蛋白。MET蛋白通过与其配体肝细胞生长因子(HGF)结合,激活PI3K/AKT、RAS/MAPK、STAT等下游信号通路,调控细胞增殖与存活以及迁移与侵袭。在肿瘤中,MET基因突变、扩增、融合或过表达可导致信号通路持续激活,促进肿瘤发生和转移,并与耐药机制相关。BTC人群的MET融合发生率低,既往的相关研究仅为个案报道。目前MET融合抑制剂克唑替尼、卡马替尼在BTC中均尚未获批FDA和NMPA的临床适应证。 MET融合伴侣基因包括CLIP2、TFG、KIF5B、BAIAP2L1、C8orf34、TPR等[81],在CCA中发现的伴侣基因包括EHBP1和CAPZA2[25]。MET融合断点主要集中于第1内含子和第14内含子等区域。断点位置决定融合蛋白功能及其对靶向治疗的反应,因此明确断点(如第15~21外显子)对指导MET靶向药物治疗至关重要。例如,KIF5B-MET融合(KIF5B第1~24外显子与MET第15~21外显子融合)中,MET第14外显子缺失可导致MET蛋白近膜结构域缺失,这与MET蛋白过表达及MET抑制剂的潜在更高缓解率相关[82]。BTC 中MET融合极为罕见,目前已有EHBP1::MET和CAPZA2::MET等个案分析报道,病人接受克唑替尼或卡马替尼治疗后疾病获得了 PR[25]。 检测方案:目前可用的检测手段主要包括FISH、RT-PCR和NGS。鉴于FISH无法识别具体融合结构及伴侣基因,RT-PCR仅限于检测已知融合类型,DNA-NGS存在因覆盖不足而漏检的风险,因此,为获得完整的融合转录本信息并明确断点与伴侣基因,推荐采用RNA-NGS作为检测方法。 2.3.7 ROS1 c-ros肉瘤致癌因子-受体酪氨酸激酶,位于人类6号染色体长臂(6q22.1),编码受体酪氨酸激酶,参与细胞生长、分化和生存信号调控。正常组织中ROS1表达水平较低,但当其与其他基因发生融合时,常形成具有致癌活性的嵌合蛋白,导致MAPK/ERK、PI3K/AKT和JAK/STAT等下游信号通路异常激活,从而驱动肿瘤发生与进展。CCA人群相关研究报道ROS1融合发生率为1.1%[83]。目前ROS1融合抑制剂克唑替尼尚未获FDA和NMPA批准用于BTC治疗。 ROS1融合的报道多见于非小细胞肺癌。CD74是其最常见的伴侣基因,其他伴侣基因包括EZR、SDC4、SLC34A2、LIMA1、MSN和TPM3等[84]。ROS1融合在BTC中相对罕见,主要见于iCCA个案报道,伴侣基因包括RDX、GOPC [85]。这些伴侣通常含有促进ROS1蛋白二聚化的结构域,从而维持其激酶活性持续激活。ROS1融合的不同伴侣基因可能影响ROS1抑制剂治疗疗效。一项多中心回顾性研究发现,携带单个CD74::ROS1融合的非小细胞肺癌病人接受克唑替尼一线治疗后的mPFS显著短于携带非CD74::ROS1融合的病人(17.0个月vs.21.0个月,P=0.008)[86]。该研究还指出,伴随TP53等抑癌基因突变的病人PFS更短,表明融合伴侣与共突变共同影响疗效。既往研究报道CCA中ROS1 重排发生率约1.1%;ROS1 融合阳性iCCA病人接受克唑替尼达到PR的治疗结果[83]。泛实体瘤RNA测序研究显示,ROS1融合伴侣具有高度异质性,且该研究中CCA病例仅有3例,因此尚无法将NSCLC或泛癌种研究发现的ROS1常见伴侣类型外推至 BTC人群中[85]。 检测方案:FISH可作为筛查手段,但无法识别具体融合结构及伴侣基因。RT-PCR主要用于检测已知融合类型。由于ROS1融合断点多位于大内含子区域,DNA-NGS可能因覆盖不足而漏检。因此,推荐采用RNA-NGS检测,以获得完整的融合转录本信息,并明确断点位置及伴侣基因类型。 共识2:对晚期不可切除或初诊需系统治疗的BTC病人,建议优先采用 DNA-NGS 与 RNA-NGS 同步共检或平行共检的高通量检测方案;当样本量、检测平台或临床时效受限时,可结合 IHC、FISH、RT-PCR、DNA-NGS 或 RNA-NGS 等方法进行互补检测和验证。(证据等级:3~4;推荐强度:A) 专家组意见:(1)获取更充分的融合基因类型等信息,对推动BTC相关临床诊疗实践和研究具有重要意义。(2)DNA-NGS可识别DNA层面的基因融合与重排,以及单核苷酸变异(SNV)、插入缺失变异(indel)、拷贝数变异(CNV)、肿瘤突变负荷(TMB)和微卫星不稳定(MSI),但不同NGS panel检测效能存在差异。RNA-NGS在检测基因融合/重排方面具有优势,并且可检测可变剪接事件以及量化基因表达水平。DNA-NGS联合RNA-NGS可获得更可靠且信息更丰富的基因突变和融合结果。(3)在RNA-NGS检测技术中,综合考虑BTC样本获取难度及检测与治疗之间的时间窗口,采用扩增子测序法更为合适。目前,技术层面已实现DNA-NGS和RNA-NGS在同一panel中进行。因此,RNA-NGS与DNA-NGS同步共检对晚期BTC病人具有重要临床意义。(4)DNA/RNA同步共检技术主要依赖扩增子法实现,受限于PCR指数扩增带来的偏倚、探针设计的非均一覆盖以及反应体系内DNA与cDNA模板间的竞争抑制,该方法在CNV定量检测上存在天然局限。鉴于此,对于临床明确需重点评估CNV的病例,推荐采用基于杂交捕获法的DNA/RNA平行共检(独立建库)策略,以确保检测的准确性与灵敏度。(5)规范的RNA-NGS与DNA-NGS检测报告应提供全面且准确的信息,包括受检者信息、样本信息、质控信息、检测项目描述(如检测范围和方法等)、实验室信息(实验室名称、操作人员及报告审核人员)以及检测结果和解读。解读部分应涵盖基因功能分析、具体变异形式,并根据证据等级评估变异与药物敏感度的关系。对融合变异的解读应包括融合基因的标识和命名、融合点位置、融合亚型,以及对融合基因进行功能和致病性评估等。
3 |BTC融合基因NGS检测样本要点
3.1 新鲜组织样本 新鲜组织样本未经过长时间室温暴露或固定包埋处理,因此核酸(尤其是RNA)降解较少、质量较高,是NGS检测的理想样本类型。新鲜组织样本来自肿瘤手术切除或穿刺活检组织,取材时应尽量选取肿瘤组织较多的区域,避开坏死组织。如为穿刺活检标本,推荐在安全前提下进行多部位穿刺取材。在肉眼难以明确判别肿瘤含量时,可采用冰冻切片判读;肿瘤成分占比需达到20%以上。直接送检的样本应在离体后10 min内置于检测试剂盒的RNA组织保存液中;若需择时送检,应在离体后30 min内将样本置于液氮或-80 ℃冰箱中,以防止DNA和RNA降解[87]。 3.2 FFPE样本 新鲜组织或细胞学样本均可制备成FFPE样本,从中可抽提DNA或RNA,分别用于DNA-NGS或RNA-NGS。尽管甲醛固定和石蜡包埋处理会导致样本中的RNA受损,但融合基因检测是定性检测,对RNA定量要求较低,FFPE样本可提取足够数量和质量的RNA进行融合基因检测[88]。 用于制备FFPE样本的离体组织应在30 min内浸入足量4%缓冲甲醛溶液中固定(液体与组织体积比为10∶1),避免使用酸性或含重金属离子的固定液。手术大标本固定6~48 h,活检小标本固定6~12 h;用于NGS检测的FFPE样本肿瘤细胞含量应在20%以上[89]。在样本肿瘤细胞含量不达标的情况下,可采用有效的肿瘤细胞富集方法,以提高肿瘤细胞比例[90];也可考虑更换检测方法,例如优先选择RNA-NGS作为替代方案。虽然FFPE样本储存时间对RNA提取总产量无显著影响,但长度>200个核苷酸的RNA片段比例(DV200)会随着储存时间逐渐降低,明显增加检测失败风险。因此,建议尽量使用保存年限较短(3~5年以内)且DV200>30%的标本进行检测[87]。当样本储存时间超过3年时,建议在检测前优先评估其核酸质量,例如通过电泳或芯片检测预先评估DNA降解程度;对于RNA分析,可进行总RNA完整性值(RIN)测定,以筛选仍适用于后续测序的样本。此外,FFPE样本中RNA的质量和完整性还受离体样本固定及时性、固定液类型、保存条件和样本厚度等因素影响,因此临床实践中应综合评估并采取严谨的质量控制措施,以保证检测结果的可靠性。 采用DNA-NGS技术检测基因CNV形式以及MSI、TMB等标记物时,组织样本的肿瘤细胞含量应>20%[91]。目前尚无明确研究结论规定RNA-NGS所需肿瘤细胞含量的最低阈值。在肿瘤细胞含量低至10%甚至5%时,如相关融合基因信使RNA(mRNA)高表达,采用RNA-NGS仍可检测到融合事件[92]。 3.3 血液样本 目前可从外周血中提取ctDNA进行融合基因检测。但在实体瘤中,利用外周血血浆游离RNA进行NGS检测的技术尚不成熟,尚不推荐从液体活检样本中提取RNA用于肿瘤融合基因检测。 共识3:FFPE 样本是BTC最常用的融合基因检测样本,并可用于 RNA-NGS 检测;为保证检测结果准确性和报告可靠性,送检样本应进行严格质控,建议优先选择保存年限较短、肿瘤细胞含量充足、核酸质量满足检测要求的 FFPE 样本。(证据等级:3-4;推荐强度:A) 专家组意见:(1)评估核酸含量是NGS质控的首要步骤。不同文库构建方法对核酸用量要求不同:扩增子法通常需25 ng DNA和25 ng RNA,最低可至10 ng[93];捕获法则分别需50~200 ng和150~1000 ng[94]。因此,对于核酸量较低的标本,NGS采用扩增子法具有较明显优势。(2)RNA-NGS检测应充分评估样本RNA完整性、文库产量和纯度等质控信息。RNA完整性可通过RIN值等指标进行判断,RIN值基于18S和28S核糖体RNA(rRNA)的电泳分析,范围为0~10,用以评估RNA完整性[95]。RIN值越高,表明RNA完整性越好,有助于保证文库制备成功率,但其更适用于高质量的新鲜冰冻样本。对于FFPE样本,由于经甲醛固定,RNA分子片段化程度较高,RIN值评估并不适用,DV200值可作为RIN值的替代指标,用于评估FFPE样本的RNA完整性[96]。DV200值指RNA样本中长度超过200个核苷酸的片段所占比例[97]。较高的DV200值表明RNA质量较好,反映出更高的完整性。多项研究发现,DV200值与文库产量呈良好相关[98-99]。RNA样本纯度评估需明确RNA样本中是否存在杂质(如DNA、蛋白质污染物等),RNA纯度可通过吸光值比率评估,包括OD260/OD280和OD260/OD230。纯RNA的OD260/OD280应>2,通常可接受范围为1.8~2.0;OD260/OD230的正常值为2.0~2.2,<2.0则表明存在污染。 基因融合在BTC发生和恶性进展等生物学行为中的重要性已逐渐受到关注。多项临床研究结果表明,针对BTC基因融合的精准治疗对改善晚期病人总体治疗效果至关重要。相关临床研究的深入和诊疗实践均需要高质量且可行的BTC融合基因检测方案。本专家共识将持续追踪并总结融合基因检测技术的发展及实体瘤临床实践成果,并在此基础上,为完善适用于中国BTC人群的基因融合规范化检测方案提供参考依据。 致谢 感谢思路迪科技(上海)有限公司医学部在文献数据校对过程中提供的帮助。  参考文献 (在框内滑动手指即可浏览) [1] Nakanuma Y, Kakuda Y. Pathologic classification of cholangiocarcinoma: new concepts[J].Best Pract Res Clin Gastroenterol, 2015, 29(2):277-293. DOI: 10.1016/j.bpg.2015.02.006. [2] Banales JM, Marin JJG, Lamarca A, et al. Cholangiocarcinoma 2020: the next horizon in mechanisms and management[J].Nat Rev Gastroenterol Hepatol, 2020, 17(9):557-588. DOI: 10.1038/s41575-020-0310-z. [3] Weinberg BA, Xiu J, Lindberg MR, et al. Molecular profiling of biliary cancers reveals distinct molecular alterations and potential therapeutic targets[J].J Gastrointest Oncol, 2019, 10(4):652-662. DOI: 10.21037/jgo.2018.08.18. [4] Lowery MA, Ptashkin R, Jordan E, et al. Comprehensive molecular profiling of intrahepatic and extrahepatic cholangiocarcinomas: potential targets for intervention[J].Clin Cancer Res, 2018, 24(17):4154-4161. DOI: 10.1158/1078-0432.CCR-18-0078. [5] Lin J, Cao Y, Yang X, et al. Mutational spectrum and precision oncology for biliary tract carcinoma[J].Theranostics, 2021, 11(10):4585-4598. DOI: 10.7150/thno.56539. [6] Mitelman F, Johansson B, Mertens F. The impact of translocations and gene fusions on cancer causation[J].Nat Rev Cancer, 2007, 7(4):233-245. DOI: 10.1038/nrc2091. [7] Terracciano L, Brozek J, Compalati E, et al. GRADE system: new paradigm[J].Curr Opin Allergy Clin Immunol, 2010, 10(4):377-383. DOI: 10.1097/ACI.0b013e32833c148b. [8] Durieux N, Vandenput S, Pasleau F. OCEBM levels of evidence system[J].Rev Med Liege, 2013, 68(12):644-649. PMID: 24505894. [9] Al-Sukhun S, Temin S, Chavez-MacGregor M, et al. ASCO resource-stratified guidelines: methods and opportunities[J].J Glob Oncol, 2018, 4:1-8. DOI: 10.1200/JGO.18.00113. [10] Johansson B, Mertens F, Schyman T, et al. Most gene fusions in cancer are stochastic events[J].Genes Chromosomes Cancer, 2019, 58(9):607-611. DOI: 10.1002/gcc.22745. [11] Farha N, Dima D, Ullah F, et al. Precision oncology targets in biliary tract cancer[J].Cancers (Basel), 2023, 15(7):2105. DOI: 10.3390/cancers15072105. [12] Kumar-Sinha C, Vats P, Tran N, et al. Genomics driven precision oncology in advanced biliary tract cancer improves survival[J].Neoplasia, 2023, 42:100910. DOI: 10.1016/j.neo.2023.100910. [13] Andraus W, Tustumi F, de Meira Junior JD, et al. Molecular profile of intrahepatic cholangiocarcinoma[J].Int J Mol Sci, 2023, 25(1):461. DOI: 10.3390/ijms25010461. [14] Rizzato M, Brignola S, Munari G, et al. Prognostic impact of FGFR2/3 alterations in patients with biliary tract cancers receiving systemic chemotherapy: the BITCOIN study[J].Eur J Cancer, 2022, 166:165-175. DOI: 10.1016/j.ejca.2022.02.013. [15] Zheng Y, Qin Y, Gong W, et al. Specific genomic alterations and prognostic analysis of perihilar cholangiocarcinoma and distal cholangiocarcinoma[J].J Gastrointest Oncol, 2021, 12(6):2631-2642. DOI: 10.21037/jgo-21-776. [16] Yin L, Han ZJ, Feng ML, et al. Chimeric transcripts observed in non-canonical FGFR2 fusions with partner genes' breakpoint located in intergenic region in intrahepatic cholangiocarcinoma[J].Cancer Genet, 2022, 266-267:39-43. DOI: 10.1016/j.cancergen.2022.06.004. [17] Jain A, Borad MJ, Kelley RK, et al. Cholangiocarcinoma with FGFR genetic aberrations: a unique clinical phenotype[J].JCO Precis Oncol, 2018, 2:1-12. DOI: 10.1200/PO.17.00080. [18] Pu X, Zhu L, Li F, et al. Target molecular treatment markers in intrahepatic cholangiocarcinoma based on Chinese population[J].Pathol Res Pract, 2020, 216(9):153116. DOI: 10.1016/j.prp.2020.153116. [19] Zhu ZZ, Dong H, Wu JG, et al. Targeted genomic profiling revealed a unique clinical phenotype in intrahepatic cholangiocarcinoma with fibroblast growth factor receptor rearrangement[J].Transl Oncol, 2021, 14(10):101168. DOI: 10.1016/j.tranon.2021.101168. [20] Lin YP, Peng LH, Dong LQ, et al. Geospatial immune heterogeneity reflects the diverse tumor-immune interactions in intrahepatic cholangiocarcinoma[J].Cancer Discov, 2022, 12(10):2350-2371. DOI: 10.1158/2159-8290.CD-21-1640. [21] Maruki Y, Morizane C, Arai Y, et al. Molecular detection and clinicopathological characteristics of advanced/recurrent biliary tract carcinomas harboring the FGFR2 rearrangements: a prospective observational study (PRELUDE Study)[J].J Gastroenterol, 2021, 56(3):250-260. DOI: 10.1007/s00535-020-01735-2. [22] Zhang X, Bai QM, Wang YL, et al. FGFR2 fusion/rearrangement analysis in intrahepatic cholangiocarcinoma using DNA/RNA-based NGS and FISH[J].Virchows Arch, 2025, 487(5):1103-1115. DOI: 10.1007/s00428-025-04067-9. [23] Solomon JP, Linkov I, Rosado A, et al. NTRK fusion detection across multiple assays and 33997 cases: diagnostic implications and pitfalls[J].Mod Pathol, 2020, 33(1):38-46. DOI: 10.1038/s41379-019-0324-7. [24] Zhou YL, Lizaso A, Mao XR, et al. Novel AMBRA1-ALK fusion identified by next-generation sequencing in advanced gallbladder cancer responds to crizotinib: a case report[J].Ann Transl Med, 2020, 8(17):1099. DOI: 10.21037/atm-20-1007. [25] Yu Y, Liu Q, Li W, et al. Identification of a novel EHBP1-MET fusion in an intrahepatic cholangiocarcinoma responding to crizotinib[J].Oncologist, 2020, 25(12):1005-1008. DOI: 10.1634/theoncologist.2020-0535. [26] Berchuck JE, Facchinetti F, DiToro DF, et al. The clinical landscape of cell-free DNA alterations in 1671 patients with advanced biliary tract cancer[J].Ann Oncol, 2022, 33(12):1269-1283. DOI: 10.1016/j.annonc.2022.09.150. [27] Vancanneyt J, Wilmsen B, Luyten C, et al. Therapeutic yield of extensive molecular profiling in cholangiocarcinoma: a retrospective single-center study[J].J Cancer Res Clin Oncol, 2023, 149(11):9173-9181. DOI: 10.1007/s00432-023-04840-w. [28] Abou-Alfa GK, Sahai V, Hollebecque A, et al. Pemigatinib for previously treated, locally advanced or metastatic cholangiocarcinoma: a multicentre, open-label, phase 2 study[J].Lancet Oncol, 2020, 21(5):671-684. DOI: 10.1016/S1470-2045(20)30109-1. [29] Patel M, Siena S, Demetri GD, et al. Efficacy and safety of entrectinib in NTRK fusion-positive gastrointestinal cancers: updated integrated analysis of three clinical trials (STARTRK-2, STARTRK-1 and ALKA-372-001)[J].Ann Oncol, 2020, 31(suppl 3):S232-S233. DOI: 10.1016/j.annonc.2020.04.056. [30] Hadfield MJ, DeCarli K, Bash K, et al. Current and emerging therapeutic targets for the treatment of cholangiocarcinoma: an updated review[J].Int J Mol Sci, 2023, 25(1):543. DOI: 10.3390/ijms25010543. [31] Mazzaferro V, El-Rayes BF, Droz Dit Busset M, et al. Derazantinib (ARQ 087) in advanced or inoperable FGFR2 gene fusion-positive intrahepatic cholangiocarcinoma[J].Br J Cancer, 2019, 120(2):165-171. DOI: 10.1038/s41416-018-0334-0. [32] Pant S, Schuler M, Iyer G, et al. Erdafitinib in patients with advanced solid tumours with FGFR alterations (RAGNAR): an international, single-arm, phase 2 study[J].Lancet Oncol, 2023, 24(8):925-935. DOI: 10.1016/S1470-2045(23)00275-9. [33] Javle MM, Fountzilas C, Li D, et al. Phase Ⅱ study of FGFR1-3 inhibitor tinengotinib as monotherapy in patients with advanced or metastatic cholangiocarcinoma: interim analysis[J].J Clin Oncol, 2023, 41(4_suppl):539. DOI: 10.1200/JCO.2023.41.4_suppl.539. [34] Xu J, Xiong J, Gu S, et al. A phase 2 study of HMPL-453, a selective FGFR tyrosine kinase inhibitor (TKI), in patients with previously treated advanced cholangiocarcinoma containing FGFR2 fusions[J].J Clin Oncol, 2023, 41(16_suppl):e16118. DOI: 10.1200/JCO.2023.41.16_suppl.e16118. [35] Javle M, Lowery M, Shroff RT, et al. Phase Ⅱ study of BGJ398 in patients with FGFR-altered advanced cholangiocarcinoma[J].J Clin Oncol, 2018, 36(3):276-282. DOI: 10.1200/JCO.2017.75.5009. [36] Borad M, Javle M, Shaib W L, et al. 59P Efficacy of derazantinib in intrahepatic cholangiocarcinoma (iCCA) patients with FGFR2 fusions, mutations or amplifications[J].Annals of Oncology, 2022, 33: S567-S568. DOI: 10.1016/j.annonc.2022.07.087. [37] Bahleda R, Italiano A, Hierro C, et al. Multicenter phase Ⅰ study of erdafitinib (JNJ-42756493), oral pan-fibroblast growth factor receptor inhibitor, in patients with advanced or refractory solid tumors[J].Clin Cancer Res, 2019, 25(16):4888-4897. DOI: 10.1158/1078-0432.CCR-18-3334. [38] Wu Q, Zhen YL, Shi L, et al. EGFR inhibition potentiates FGFR inhibitor therapy and overcomes resistance in FGFR2 fusion-positive cholangiocarcinoma[J].Cancer Discov, 2022, 12(5):1378-1395. DOI: 10.1158/2159-8290.CD-21-1168. [39] Subbiah V, Iannotti NO, Gutierrez M, et al. FIGHT-101, a first-in-human study of potent and selective FGFR 1-3 inhibitor pemigatinib in pan-cancer patients with FGF/FGFR alterations and advanced malignancies[J].Ann Oncol, 2022, 33(5):522-533. DOI: 10.1016/j.annonc.2022.02.001. [40] Saborowski A, Lehmann U, Vogel A. FGFR inhibitors in cholangiocarcinoma: what's now and what's next?[J].Ther Adv Med Oncol, 2020, 12:1758835920953293. DOI: 10.1177/1758835920953293. [41] Westphalen CB, Krebs MG, Le Tourneau C, et al. Genomic context of NTRK1/2/3 fusion-positive tumours from a large real-world population[J].NPJ Precis Oncol, 2021, 5(1):69. DOI: 10.1038/s41698-021-00206-y. [42] Goyal L, Lamarca A, Strickler JH, et al. The natural history of fibroblast growth factor receptor (FGFR)-altered cholangiocarcinoma (CCA)[J].J Clin Oncol, 2020, 38(15_suppl):e16686. DOI: 10.1200/JCO.2020.38.15_suppl.e16686. [43] Pu X, Ye Q, Cai J, et al. Typing FGFR2 translocation determines the response to targeted therapy of intrahepatic cholangiocarcinomas[J].Cell Death Dis, 2021, 12(3):256. DOI: 10.1038/s41419-021-03548-4. [44] Sharma P, Sivakumar N, Pandiar D. Diagnostic accuracy of pan-TRK immunohistochemistry in differentiating secretory carcinoma from acinic cell carcinoma of salivary gland: a systematic review[J].J Oral Pathol Med, 2023, 52(3):255-262. DOI: 10.1111/jop.13373. [45] Tang Z, Wang L, Tang G, et al. Fluorescence in situ hybridization (FISH) for detecting anaplastic lymphoma kinase (ALK) rearrangement in lung cancer: clinically relevant technical aspects[J].Int J Mol Sci, 2019, 20(16):3939. DOI: 10.3390/ijms20163939. [46] Picard C, Silvy M, Gabert J. Overview of real-time RT-PCR strategies for quantification of gene rearrangements in the myeloid malignancies[J].Methods Mol Med, 2006, 125:27-68. DOI: 10.1385/1-59745-017-0:27. [47] Ordulu Z, Nardi V. Molecular detection of oncogenic gene rearrangements[J].Clin Lab Med, 2022, 42(3):435-449. DOI: 10.1016/j.cll.2022.05.002. [48] Batra U, Nathany S, Sharma M, et al. IHC versus FISH versus NGS to detect ALK gene rearrangement in NSCLC: all questions answered?[J].J Clin Pathol, 2022, 75(6):405-409. DOI: 10.1136/jclinpath-2021-207408. [49] Benayed R, Offin M, Mullaney K, et al. High yield of RNA sequencing for targetable kinase fusions in lung adenocarcinomas with no mitogenic driver alteration detected by DNA sequencing and low tumor mutation burden[J].Clin Cancer Res, 2019, 25(15):4712-4722. DOI: 10.1158/1078-0432.CCR-19-0225. [50] Dobin A, Davis CA, Schlesinger F, et al. STAR: ultrafast universal RNA-seq aligner[J].Bioinformatics, 2013, 29(1):15-21. DOI: 10.1093/bioinformatics/bts635. [51] Oneda E, Astore S, Gandolfi L, et al. Which therapy in biliary tract cancer? Review of main concerns in diagnosis and choice of therapy in advanced setting, current standard, and new options[J].Expert Opin Pharmacother, 2024, 25(13):1807-1823. DOI: 10.1080/14656566.2024.2406287. [52] 中华医学会病理学分会, 国家病理质控中心. 实体瘤常见驱动基因DNA和RNA高通量测序共检专家共识(2025版)[J].中华病理学杂志, 2025, 54(7): 701-709. DOI: 10.3760/cma.j.cn112151-20250409-00255. [53] Beadling C, Wald AI, Warrick A, et al. A multiplexed amplicon approach for detecting gene fusions by next-generation sequencing[J].J Mol Diagn, 2016, 18(2):165-175. DOI: 10.1016/j.jmoldx.2015.10.002. [54] Singh RR. Target enrichment approaches for next-generation sequencing applications in oncology[J].Diagnostics (Basel), 2022, 12(7):1539. DOI: 10.3390/diagnostics12071539. [55] Seager M, Aisner DL, Davies KD. Oncogenic gene fusion detection using anchored multiplex polymerase chain reaction followed by next generation sequencing[J].J Vis Exp, 2019(149):59895. DOI: 10.3791/59895. [56] Pritchard CC, Salipante SJ, Koehler K, et al. Validation and implementation of targeted capture and sequencing for the detection of actionable mutation, copy number variation, and gene rearrangement in clinical cancer specimens[J].J Mol Diagn, 2014, 16(1):56-67. DOI: 10.1016/j.jmoldx.2013.08.004. [57] Silverman IM, Li MJ, Murugesan K, et al. Validation and characterization of FGFR2 rearrangements in cholangiocarcinoma with comprehensive genomic profiling[J].J Mol Diagn, 2022, 24(4):351-364. DOI: 10.1016/j.jmoldx.2021.12.012. [58] Zhang L, Zheng H, Xu LY, et al. A robust FISH assay to detect FGFR2 translocations in intrahepatic cholangiocarcinoma patients[J].Diagnostics (Basel), 2023, 13(12):2088. DOI: 10.3390/diagnostics13122088. [59] Silverman IM, Hollebecque A, Friboulet L, et al. Clinicogenomic analysis of FGFR2-rearranged cholangiocarcinoma identifies correlates of response and mechanisms of resistance to pemigatinib[J].Cancer Discov, 2021, 11(2):326-339. DOI: 10.1158/2159-8290.CD-20-0766. [60] Goyal L, Kongpetch S, Crolley VE, et al. Targeting FGFR inhibition in cholangiocarcinoma[J].Cancer Treat Rev, 2021, 95:102170. DOI: 10.1016/j.ctrv.2021.102170. [61] Qi C, Shen L, André T, et al. Efficacy and safety of larotrectinib in patients with TRK fusion gastrointestinal cancer[J].Eur J Cancer, 2025, 220:115338. DOI: 10.1016/j.ejca.2025.115338. [62] Kim EE, Park CK, Kim SK, et al. NTRK-fused central nervous system tumours: clinicopathological and genetic insights and response to TRK inhibitors[J].Acta Neuropathol Commun, 2024, 12(1):118. DOI: 10.1186/s40478-024-01798-9. [63] Wallen ZD, Tierno M, Schnettler E, et al. RNA hybrid-capture next-generation sequencing has high sensitivity in identifying known and less characterized oncogenic and likely oncogenic NTRK fusions in a real-world standard-of-care setting[J].Front Genet, 2025, 16:1550706. DOI: 10.3389/fgene.2025.1550706. [64] Subbiah V, Cassier PA, Siena S, et al. Pan-cancer efficacy of pralsetinib in patients with RET fusion-positive solid tumors from the phase 1/2 ARROW trial[J].Nat Med, 2022, 28(8):1640-1645. DOI: 10.1038/s41591-022-01931-y. [65] Subbiah V, Wolf J, Konda B, et al. Tumour-agnostic efficacy and safety of selpercatinib in patients with RET fusion-positive solid tumours other than lung or thyroid tumours (LIBRETTO-001): a phase 1/2, open-label, basket trial[J].Lancet Oncol, 2022, 23(10):1261-1273. DOI: 10.1016/S1470-2045(22)00541-1. [66] Takeuchi K, Soda M, Togashi Y, et al. RET, ROS1 and ALK fusions in lung cancer[J].Nat Med, 2012, 18(3):378-381. DOI: 10.1038/nm.2658. [67] Staubitz JI, Schad A, Springer E, et al. Novel rearrangements involving the RET gene in papillary thyroid carcinoma[J].Cancer Genet, 2019, 230:13-20. DOI: 10.1016/j.cancergen.2018.11.002. [68] Wu JL, Iams WT. Acquired RUFY1-RET rearrangement as a mechanism of resistance to lorlatinib in a patient with CD74-ROS1 rearranged non-small cell lung cancer: a case report[J].Oncotarget, 2025, 16:39-42. DOI: 10.18632/oncotarget.28682. [69] Bing ZX, Wang WR, Wang DH, et al. Identification of RET fusion as mechanisms of resistance to EGFR tyrosine-kinase inhibitors[J].J Clin Oncol, 2021, 39(15_suppl):e21074. DOI: 10.1200/JCO.2021.39.15_suppl.e21074. [70] Lin JJ, Liu SV, McCoach CE, et al. Mechanisms of resistance to selective RET tyrosine kinase inhibitors in RET fusion-positive non-small-cell lung cancer[J].Ann Oncol, 2020, 31(12):1725-1733. DOI: 10.1016/j.annonc.2020.09.015. [71] Kucharczyk T, Nicoś M, Kucharczyk M, et al. NRG1 gene fusions-what promise remains behind these rare genetic alterations? A comprehensive review of biology, diagnostic approaches, and clinical implications[J].Cancers (Basel), 2024, 16(15):2766. DOI: 10.3390/cancers16152766. [72] Schram AM, Goto K, Kim DW, et al. Efficacy of zenocutuzumab in NRG1 fusion-positive cancer[J].N Engl J Med, 2025, 392(6):566-576. DOI: 10.1056/NEJMoa2405008. [73] Severson E, Achyut BR, Nesline M, et al. RNA sequencing identifies novel NRG1 fusions in solid tumors that lack co-occurring oncogenic drivers[J].J Mol Diagn, 2023, 25(7):454-466. DOI: 10.1016/j.jmoldx.2023.03.011. [74] Jonna S, Feldman RA, Swensen J, et al. Detection of NRG1 gene fusions in solid tumors[J].Clin Cancer Res, 2019, 25(16):4966-4972. DOI: 10.1158/1078-0432.CCR-19-0160. [75] Du X, Shao Y, Qin HF, et al. ALK-rearrangement in non-small-cell lung cancer (NSCLC)[J].Thorac Cancer, 2018, 9(4):423-430. DOI: 10.1111/1759-7714.12613. [76] Li W, Guo L, Liu YT, et al. Potential unreliability of uncommon ALK, ROS1, and RET genomic breakpoints in predicting the efficacy of targeted therapy in NSCLC[J].J Thorac Oncol, 2021, 16(3):404-418. DOI: 10.1016/j.jtho.2020.10.156. [77] Li MN, Tang QS, Chen SA, et al. A novel HIP1-ALK fusion variant in lung adenocarcinoma showing resistance to crizotinib[J].Lung Cancer, 2021, 151:98-100. DOI: 10.1016/j.lungcan.2020.11.014. [78] Christopoulos P, Endris V, Bozorgmehr F, et al. EML4-ALK fusion variant V3 is a high-risk feature conferring accelerated metastatic spread, early treatment failure and worse overall survival in ALK(+) non-small cell lung cancer[J].Int J Cancer, 2018, 142(12):2589-2598. DOI: 10.1002/ijc.31275. [79] Trombetta D, Parente P, Latiano TP, et al. Identification of EML4-ALK fusion in a sporadic case of cholangiocarcinoma[J].Eur J Intern Med, 2020, 71:92-94. DOI: 10.1016/j.ejim.2019.10.030. [80] Valery M, Facchinetti F, Malka D, et al. Cholangiocarcinoma with STRN-ALK translocation treated with ALK inhibitors[J].Dig Liver Dis, 2021, 53(12):1664-1665. DOI: 10.1016/j.dld.2021.09.001. [81] Guo R, Luo J, Chang J, et al. MET-dependent solid tumours: molecular diagnosis and targeted therapy[J].Nat Rev Clin Oncol, 2020, 17(9):569-587. DOI: 10.1038/s41571-020-0377-z. [82] Camidge DR, Bar J, Horinouchi H, et al. Telisotuzumab vedotin monotherapy in patients with previously treated c-MET protein-overexpressing advanced nonsquamous EGFR-wildtype non-small cell lung cancer in the phase Ⅱ LUMINOSITY trial[J].J Clin Oncol, 2024, 42(25):3000-3011. DOI: 10.1200/JCO.24.00720. [83] Lim SM, Yoo JE, Lim KH, et al. Rare incidence of ROS1 rearrangement in cholangiocarcinoma[J].Cancer Res Treat, 2017, 49(1):185-192. DOI: 10.4143/crt.2015.497. [84] Arnaoutakis K. Crizotinib in ROS1-rearranged non-small-cell lung cancer[J].N Engl J Med, 2015, 372(7):683. DOI: 10.1056/NEJMc1415359. [85] Nagasaka M, Zhang SS, Baca Y, et al. Pan-tumor survey of ROS1 fusions detected by next-generation RNA and whole transcriptome sequencing[J].BMC Cancer, 2023, 23(1):1000. DOI: 10.1186/s12885-023-11457-2. [86] Zhang Y, Zhang XY, Zhang RG, et al. Clinical and molecular factors that impact the efficacy of first-line crizotinib in ROS1-rearranged non-small-cell lung cancer: a large multicenter retrospective study[J].BMC Med, 2021, 19(1):206. DOI: 10.1186/s12916-021-02082-6. [87] 中国抗癌协会胆道肿瘤专业委员会. 中国抗癌协会胆道恶性肿瘤靶向及免疫治疗指南(2024)(简要版)[J].中国实用外科杂志, 2024, 44(9): 970-983. DOI: 10.19538/j.cjps.issn1005-2208.2024.09.02. [88] Peng H, Huang R, Wang K, et al. Development and validation of an RNA sequencing assay for gene fusion detection in formalin-fixed, paraffin-embedded tumors[J].J Mol Diagn, 2021, 23(2):223-233. DOI: 10.1016/j.jmoldx.2020.11.005. [89] 中国临床肿瘤学会非小细胞肺癌专家委员会. 二代测序技术在NSCLC中的临床应用中国专家共识(2020版)[J].中国肺癌杂志, 2020, 23(9): 741-761. DOI: 10.3779/j.issn.1009-3419.2020.101.45. [90] Lin DI, Huang RSP, Ladas L, et al. Precision needle-punch tumor enrichment from paraffin blocks improves the detection of clinically actionable genomic alterations and biomarkers[J].Front Oncol, 2024, 14:1328512. DOI: 10.3389/fonc.2024.1328512. [91] Su D, Zhang DD, Chen KY, et al. High performance of targeted next generation sequencing on variance detection in clinical tumor specimens in comparison with current conventional methods[J].J Exp Clin Cancer Res, 2017, 36(1):121. DOI: 10.1186/s13046-017-0591-4. [92] Mitiushkina NV, Tiurin VI, Anuskina AA, et al. Molecular analysis of biliary tract cancers with the custom 3'RACE-based NGS panel[J].Diagnostics (Basel), 2023, 13(20):3168. DOI: 10.3390/diagnostics13203168. [93] Chang F, Li MM. Clinical application of amplicon-based next-generation sequencing in cancer[J].Cancer Genet, 2013, 206(12):413-419. DOI: 10.1016/j.cancergen.2013.10.003. [94] Chen H, Wang B, Zhang YR, et al. A unified DNA- and RNA-based NGS strategy for the analysis of multiple types of variants at the dual nucleic acid level in solid tumors[J].J Clin Lab Anal, 2023, 37(19-20):e24977. DOI: 10.1002/jcla.24977. [95] Schroeder A, Mueller O, Stocker S, et al. The RIN: an RNA integrity number for assigning integrity values to RNA measurements[J].BMC Mol Biol, 2006, 7:3. DOI: 10.1186/1471-2199-7-3. [96] Gallego Romero I, Pai AA, Tung J, et al. RNA-seq: impact of RNA degradation on transcript quantification[J].BMC Biol, 2014, 12:42. DOI: 10.1186/1741-7007-12-42. [97] Matsubara T, Soh J, Morita M, et al. DV200 index for assessing RNA integrity in next-generation sequencing[J].Biomed Res Int, 2020, 2020:9349132. DOI: 10.1155/2020/9349132. [98] Manjunath HS, Al Khulaifi M, Sidahmed H, et al. Gene expression profiling of FFPE samples: a titration test[J].Technol Cancer Res Treat, 2022, 21:15330338221129710. DOI: 10.1177/15330338221129710. [99] Ondracek RP, Chen JH, Marosy B, et al. Results and lessons from dual extraction of DNA and RNA from formalin-fixed paraffin-embedded breast tumor tissues for a large cancer epidemiologic study[J].BMC Genomics, 2022, 23(1):614. DOI: 10.1186/s12864-022-08837-6. (2026-05-22收稿) 版权声明 本文为《中国实用外科杂志》原创文章。其他媒体、网站、公众号等如需转载本文,请联系本刊编辑部获得授权,并在文题下醒目位置注明“原文刊发于《中国实用外科杂志》,卷(期):起止页码”。谢谢合作! 
相关指南
- 指南与共识|中国抗癌协会胆道恶性肿瘤靶向及免疫治疗指南(2024)(简要版) · 消化内科 2024
- 指南与共识|胆道恶性肿瘤融合基因检测临床实践中国专家共识(2026版) · 消化内科 2026
- 指南与共识|胆道恶性肿瘤融合基因检测临床实践中国专家共识(2026版) · 消化内科 2026
- 指南与共识|胆道恶性肿瘤融合基因检测临床实践中国专家共识(2026版) · 消化内科 2026
- 指南与共识|胆道恶性肿瘤融合基因检测临床实践中国专家共识(2026版) · 消化内科 2026
- 0bda96368841127b94ed2d7e042cf1827304490130628008__【肺癌-2025】中国驱动基因阳性非小细胞肺癌脑转移 临床诊疗指南(2025版) · 肿瘤内科 2025
- 老年晚期肺癌治疗专家共识(2025版) · 肿瘤内科 2025
引用 / 出处
中国实用外科杂志. 指南与共识|胆道恶性肿瘤融合基因检测临床实践中国专家共识(2026版)[J]. 中国实用外科杂志, 2026.